

Tras haber invertido dos moléculas de ATP y reorganizado los enlaces en los pasos previos, la célula llega al desenlace de la primera fase de la glucólisis. La molécula de fructosa-1,6-bisfosfato está cargada negativamente en ambos extremos, tensionada y perfectamente alineada. Es el momento de dejar caer la cuchilla enzimática: la aldolasa (formalmente, fructosa-1,6-bisfosfato aldolasa) parte este esqueleto de seis carbonos en dos fragmentos de tres carbonos.
$$\text{Fructosa-1,6-bisfosfato} \xrightleftharpoons{\text{Aldolasa}} \text{Dihidroxiacetona fosfato (DHAP)} + \text{Gliceraldehído-3-fosfato (G-3-P)}$$
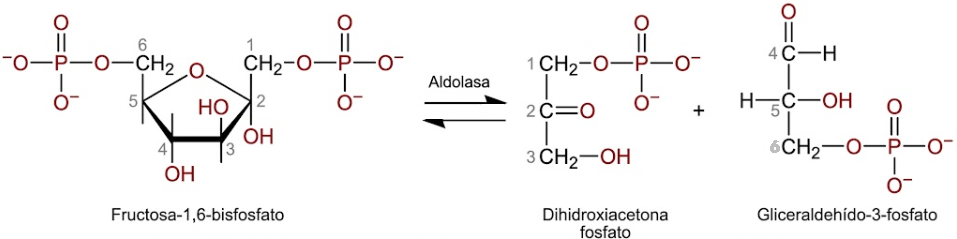
Esta reacción es una escisión aldólica retroactiva (el proceso químicamente inverso a una condensación aldólica). En ella, el hexágono original rinde dos triosas fosfato funcionalmente distintas: una cetosa (dihidroxiacetona fosfato) y una aldosa (gliceraldehído-3-fosfato).
El mapa de los carbonos: La recompensa a la jugada de la isomerasa
En este paso cobra pleno sentido la maniobra realizada en la Reacción 2. Si la célula hubiera intentado partir la glucosa-6-fosfato original (con el grupo carbonilo en el carbono 1), la escisión aldólica se habría producido entre los carbonos 2 y 3, arrojando un fragmento de dos carbonos y otro de cuatro, lo que habría obligado al citoplasma a mantener dos vías metabólicas paralelas.
Al haber mudado el carbonilo al carbono 2, la aldolasa rompe el enlace covalente situado exactamente entre el C-3 y el C-4:
- Los carbonos 1, 2 y 3 se convierten en la dihidroxiacetona fosfato (DHAP), reteniendo el fosfato en el C-1.
- Los carbonos 4, 5 y 6 emergen como gliceraldehído-3-fosfato (G-3-P), portando el fosfato en el C-6 original (que ahora pasa a ser la posición 3 de la triosa).
Ambas moléculas conservan su grupo fosfato intacto, garantizando que ninguna de las dos mitades pueda escapar a través de la membrana celular.
La paradoja termodinámica: Subir una montaña para avanzar
Al consultar los manuales de química física, la Reacción 4 presenta una anomalía desconcertante: su variación de energía libre estándar es fuertemente positiva ($\Delta G^{\circ\prime} = +23{,}8\text{ kJ/mol}$). En condiciones estándar de laboratorio (concentraciones 1 M de todos los reactivos y productos), esta reacción es termodinámicamente inviable en sentido directo; el equilibrio favorece abrumadoramente que las dos triosas se condensen de nuevo en fructosa-1,6-bisfosfato.
¿Cómo logra la célula forzar este corte en el citosol vivo? Mediante el principio de acción de masas y el drenaje constante de productos:
- En el interior celular, las concentraciones reales de DHAP y G-3-P se mantienen en niveles extremadamente bajos (en el rango micromolar).
- El gliceraldehído-3-fosfato es retirado instantáneamente por la Reacción 6, mientras que la DHAP se convierte sin pausa en más G-3-P mediante la Reacción 5.
Al desaparecer los productos en cuanto se forman, el cociente de reacción ($Q$) se desploma por debajo de la constante de equilibrio ($K_{eq}$). La ecuación real de Gibbs ($\Delta G = \Delta G^{\circ\prime} + RT \ln Q$) se vuelve cercana a cero o ligeramente negativa ($\Delta G \approx -0{,}3\text{ kJ/mol}$), permitiendo que el flujo metabólico avance con total fluidez.
El bisturí químico: La base de Schiff (Aldolasas de Clase I)
En los animales y plantas superiores, la aldolasa pertenece a la Clase I. Su centro activo no se limita a empujar la molécula; emplea una estrategia de catálisis covalente que estabiliza intermediarios inestables:
- Un residuo de lisina del centro activo ataca el grupo carbonilo (C-2) de la fructosa-1,6-bisfosfato.
- Se forma un enlace covalente carbono-nitrógeno cargado positivamente, conocido como base de Schiff protonada (un ión iminio).
- Este nitrógeno cargado actúa como un potente «sumidero de electrones», atrayendo la densidad electrónica hacia sí y debilitando de forma crítica el enlace covalente entre C-3 y C-4.
- Un residuo de tirosina o aspartato arranca el protón del grupo hidroxilo en C-4, desencadenando la fractura limpia de la cadena: el G-3-P se libera de inmediato, mientras que el fragmento de DHAP permanece momentáneamente anclado a la lisina de la enzima hasta que una molécula de agua hidroliza la base de Schiff y lo libera al citosol.
(En bacterias y hongos, la enzima suele ser de Clase II: en lugar de una base de Schiff con lisina, utilizan un catión bivalente de zinc, $Zn^{2+}$, para coordinar y polarizar el oxígeno del carbonilo).
Con este paso, la hexosa inicial ha quedado oficialmente seccionada. Sin embargo, la célula se encuentra ahora con dos moléculas distintas en el citosol y solo una de ellas puede continuar por la ruta convencional.