

Si la primera fosforilación de la glucosa fue una trampa para retener el combustible dentro de la célula, la Reacción 3 es la firma del contrato: una vez que una molécula de azúcar supera este paso, ya no hay vuelta atrás. La glucosa-6-fosfato aún podía desviarse hacia la síntesis de glucógeno o adentrarse en la ruta de las pentosas fosfato para fabricar nucleótidos; sin embargo, cuando la enzima fosfofructoquinasa-1 (PFK-1) entra en acción, el destino del azúcar queda sellado exclusivamente hacia su combustión glucolítica.
$$\text{Fructosa-6-fosfato} + \text{ATP} \xrightarrow{\text{PFK-1 / Mg}^{2+}} \text{Fructosa-1,6-bisfosfato} + \text{ADP} + \text{H}^+$$
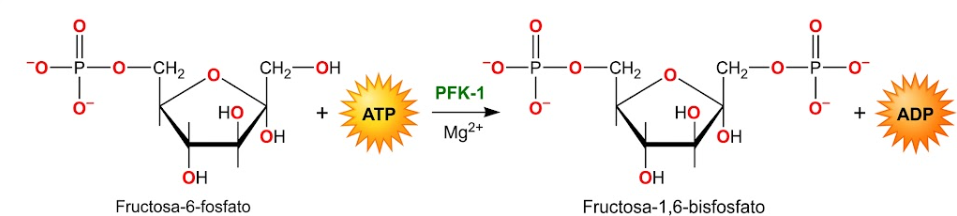
La inversión del segundo ATP: Simetría y confinamiento
Gastar una segunda molécula de ATP cuando la célula pretende obtener energía parece un contrasentido contable, pero responde a dos imperativos biofísicos determinantes:
- El declive termodinámico irreversible: La transferencia del grupo fosforilo desde el ATP al hidroxilo del carbono 1 de la fructosa libera una enorme cantidad de energía libre ($\Delta G^{\circ\prime} \approx -14{,}2\text{ kJ/mol}$). Este desnivel térmico convierte a la reacción en un canal unidireccional bajo condiciones fisiológicas: la PFK-1 empuja el flujo metabólico con una fuerza que impide el retroceso.
- Bisfosfato, no difosfato (El truco de las dos anclas): En bioquímica, el prefijo di- se reserva para fosfatos unidos entre sí en serie (como en el ADP), mientras que bis- designa dos fosfatos anclados en carbonos completamente independientes. Al colocar un fosfato en el carbono 1 y conservar el previo en el carbono 6, la molécula adquiere dos polos cargados negativamente. Cuando la enzima aldolasa parta este azúcar en dos mitades en el siguiente paso, ambas triosas resultantes conservarán un grupo fosfato. Ninguna de las dos mitades podrá deslizarse fuera de la célula ni requerirá un gasto energético extra para quedar confinada en el citosol.
La paradoja del ATP: Sustrato y veneno a la vez
La PFK-1 es un complejo tetramérico que actúa como el verdadero marcapasos o sensor maestro de la glucólisis. Su comportamiento frente al ATP encierra una de las mayores joyas de la cinemática enzimática:
- El ATP como sustrato: La enzima necesita ATP en su centro catalítico activo para transferir el fosfato a la fructosa-6-fosfato. A concentraciones bajas de ATP, la enzima incrementa su actividad de manera normal conforme encuentra más combustible.
- El ATP como inhibidor alostérico: La PFK-1 posee un segundo sitio de unión específico: un sitio alostérico regulador situado lejos del centro activo. Cuando la célula está rebosante de energía y las concentraciones de ATP se elevan, el ATP sobrante se ancla a este bolsillo alostérico. La unión induce un cambio conformacional radical que reduce drásticamente la afinidad del centro activo por la fructosa-6-fosfato, frenando la glucólisis en seco. ¿Para qué seguir quemando azúcar si las arcas energéticas ya están llenas?
- El freno del citrato: Si el ciclo de Krebs en la mitocondria se satura, el citrato escapa al citosol celular. Su presencia actúa como un chivato molecular que potencia la acción inhibitoria del ATP sobre la PFK-1, avisando de que los hornos biosintéticos ya no dan abasto.
El grito de alarma del AMP: El amplificador de emergencia
Cuando la energía celular decae, cabría esperar que la señal de rescate fuera el aumento de ADP. Sin embargo, la célula recurre a un sensor infinitamente más sensible: el AMP (monofosfato de adenosina).
En situaciones de sobreesfuerzo, la enzima adenilato quinasa recicla dos moléculas de ADP para rascar una de ATP de emergencia:
$$2\,\text{ADP} \rightleftharpoons \text{ATP} + \text{AMP}$$
Debido a que los niveles basales de AMP en el citosol son minúsculos en comparación con los de ATP, una pequeña caída porcentual de ATP desencadena un aumento porcentual desorbitado de AMP. Este metabolito se acopla a la PFK-1 como un potente activador alostérico, neutralizando la inhibición del ATP y obligando a la enzima a trabajar a toda máquina para rescatar a la célula de la asfixia energética.
Fructosa-2,6-bisfosfato: El mando a distancia del hígado
En órganos centrales como el hígado, el control de la glucólisis no puede depender únicamente del estado energético local; debe obedecer a las necesidades de glucosa de todo el organismo. Aquí entra en juego el regulador alostérico más potente que se conoce: la fructosa-2,6-bisfosfato ($F\text{-}2,6\text{-BP}$).
La $F\text{-}2,6\text{-BP}$ no es un intermediario directo de la glucólisis; es una molécula señalizadora sintetizada y destruida por una singular enzima bifuncional (PFK-2 / FBPasa-2) que posee dos cabezas catalíticas opuestas en una sola cadena peptídica:
- Abundancia tras la comida (Eje de la Insulina):
- Los niveles altos de glucosa estimulan la liberación de insulina, la cual promueve la desfosforilación de la enzima bifuncional. En este estado, la cabeza de quinasa (PFK-2) se enciende y la de fosfatasa se apaga, sintetizando grandes cantidades de $F\text{-}2,6\text{-BP}$. Esta molécula desbloquea a la PFK-1 a nivel alostérico y simultáneamente inhibe a la enzima inversa de la gluconeogénesis (la fructosa-1,6-bisfosfatasa). Resultado: la glucólisis avanza a paso firme para metabolizar el exceso de glucosa.
- Periodo de ayuno (Eje del Glucagón):
- Cuando la glucemia cae, el páncreas segrega glucagón, que activa a la proteína quinasa A (PKA) mediante el mensajero AMP cíclico. La PKA fosforila la enzima bifuncional: la cabeza PFK-2 se silencia y despierta la fosfatasa (FBPasa-2), degradando la $F\text{-}2,6\text{-BP}$. Sin este activador, la PFK-1 se apaga de inmediato y se levanta el freno sobre la gluconeogénesis, permitiendo al hígado exportar glucosa nueva a la sangre en lugar de consumirla.
La PFK-1 representa la cumbre de la lógica regulatoria celular: una compuerta biofísica donde convergen el estado energético del citosol, el rendimiento mitocondrial y las órdenes hormonales de todo el organismo antes de autorizar la partición final del esqueleto del azúcar.