

Tras atrapar a la molécula de glucosa con un candado de fosfato en el carbono 6, la célula se topa de inmediato con un obstáculo geométrico: la glucosa-6-fosfato es una aldosa (posee un grupo carbonilo en el extremo C-1) y adopta una estructura cíclica de seis miembros (anillo de piranosa). Si la célula intentara fracturar la molécula en este estado, una escisión aldólica produciría fragmentos desiguales de dos y cuatro carbonos, obligando al citoplasma a gestionar dos vías catabólicas distintas.
Para preparar un corte limpio y simétrico en dos mitades intercambiables de tres carbonos, entra en acción la segunda enzima de la ruta: la fosfoglucosa isomerasa (PGI), también conocida como fosfohexosa isomerasa.
$$\text{Glucosa-6-fosfato (G-6-P)} \xrightleftharpoons{\text{Fosfoglucosa isomerasa}} \text{Fructosa-6-fosfato (F-6-P)}$$
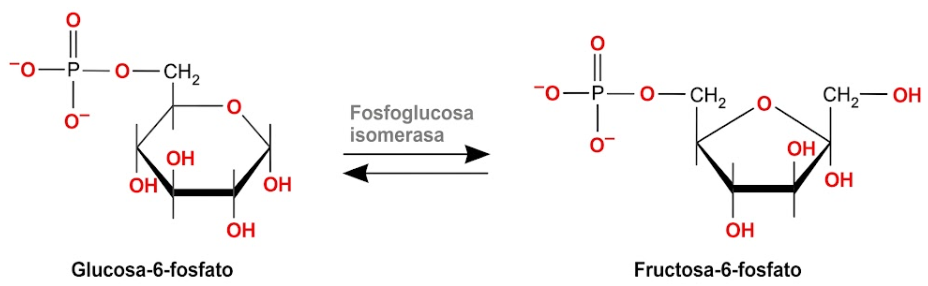
La lógica estratégica: Dos jugadas maestras en un solo movimiento
Esta isomerización de una aldosa en una cetosa no es un capricho estético; es una maniobra de preparación mecánica indispensable para los dos pasos subsiguientes:
- Despejar la pista para la Reacción 3 (El C-1 queda libre): En la glucosa-6-fosfato cíclica, el carbono 1 forma parte del enlace hemiacetal que cierra el anillo, lo que impide anclarle un grupo fosfato. Al trasladar el grupo carbonilo al carbono 2, el carbono 1 se convierte en un alcohol primario libre ($-CH_2OH$) que asoma fuera del anillo, listo para ser fosforilado en el siguiente paso por la fosfofructoquinasa-1 (PFK-1).
- Garantizar la simetría para la Reacción 4 (La fractura por aldolasa): La escisión aldólica rompe siempre el enlace adyacente a un grupo carbonilo (rotura $\alpha,\beta$). Al ubicar la cetona en el carbono 2, la cuchilla enzimática de la aldolasa cortará exactamente entre el C-3 y el C-4, rindiendo dos triosas fosforiladas de tres carbonos gemelas o fácilmente interconvertibles: el gliceraldehído-3-fosfato y la dihidroxiacetona fosfato.
La coreografía catalítica: El intermediario enediol
La fosfoglucosa isomerasa no puede limitarse a mover átomos sobre la superficie del anillo cerrado. Para mudar el carbonilo del C-1 al C-2, la enzima ejecuta una acrobacia molecular en cuatro tiempos dentro de su centro activo:
- 1. Apertura del anillo: El residuo de histidina de la enzima actúa como un catalizador ácido-base que cede un protón al oxígeno del anillo, provocando la apertura de la piranosa y extendiendo la glucosa en su cadena abierta lineal.
- 2. La extracción del protón: Un residuo de glutamato de la enzima, actuando como base general, arranca un protón ($H^+$) del carbono 2. Los electrones sobrantes se deslocalizan entre el C-1 y el C-2, generando un doble enlace carbono-carbono transitorio: el intermediario cis-enediol (o enediolato).
- 3. La recolocación del doble enlace: El glutamato devuelve el protón, pero no al C-2 de donde lo sacó, sino al carbono 1. Este sutil trasvase electrónico desplaza el grupo carbonilo ($=O$) del carbono 1 al carbono 2: la aldosa lineal se ha transformado oficialmente en una cetosa lineal.
- 4. Cierre en pentágono (Furanosa): El grupo hidroxilo del carbono 5 ejecuta un ataque nucleofílico intramolecular sobre la flamante cetona del C-2. El anillo se cierra de nuevo, pero al estar el carbonilo en posición 2, forma un anillo de cinco miembros: la $\beta$-D-fructofuranosa-6-fosfato.
Equilibrio termodinámico: Una compuerta de vaivén
A diferencia de la fosforilación inicial por la hexoquinasa, esta reacción de isomerización es fácilmente reversible.
El cambio de energía libre estándar es muy pequeño ($\Delta G^{\circ\prime} \approx +1{,}7\text{ kJ/mol}$), y en las concentraciones reales dentro del citoplasma, la reacción oscila prácticamente en el equilibrio ($\Delta G \approx -1{,}4\text{ kJ/mol}$). La enzima no gasta ATP ni impone una dirección fija: si la célula está en plena glucólisis, el consumo voraz de F-6-P por el siguiente paso empuja el flujo hacia adelante; si el organismo activa la gluconeogénesis para fabricar glucosa, la misma fosfoglucosa isomerasa cataliza el viaje de vuelta hacia G-6-P sin el menor esfuerzo.