

En cuanto una molécula de glucosa cruza la membrana celular, la célula le tiende una trampa bioquímica inmediata de la que no podrá escapar: le añade una etiqueta de fosfato. Esta primera reacción de la glucólisis no solo marca el punto de no retorno para el combustible, sino que ilustra una de las lecciones de reparto de recursos más fascinantes del cuerpo humano.
$$\text{Glucosa} + \text{ATP} \xrightarrow{\text{Hexoquinasa / Mg}^{2+}} \text{Glucosa-6-fosfato} + \text{ADP} + \text{H}^+$$
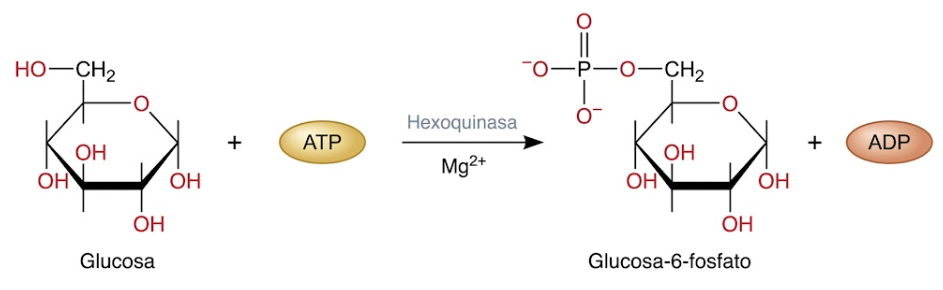
El cepo molecular: ¿Por qué fosforilar la glucosa?
La fosforilación en el carbono 6 de la glucosa cumple dos propósitos indispensables:
- El secuestro intracelular: La glucosa entra a la célula mediante proteínas de transporte facilitado (los transportadores GLUT), que solo reconocen moléculas neutras. Al transferirle un grupo fosfato cargado negativamente, la glucosa adquiere una fuerte carga eléctrica ($PO_4^{2-}$). La membrana lipídica hidrofóbica se vuelve completamente impermeable para ella y los transportadores GLUT ya no pueden expulsarla.
- La desestabilización química: La glucosa pura es una molécula químicamente dócil y poco reactiva. Al añadirle el fosfato mediante un enlace éster, la célula eleva su contenido energético libre, dejándola lista y tensionada para los cortes que vendrán más adelante en la ruta.
La reacción es termodinámicamente irreversible en el citoplasma: la liberación de energía que acompaña a la hidrólisis del ATP es tan acusada que la enzima es incapaz de acoplar el proceso en sentido inverso.
El escudo invisible: El complejo ATP-$Mg^{2+}$
En los esquemas bioquímicos suele escribirse simplemente «ATP», pero en realidad la enzima jamás toca una molécula de ATP desnuda. Los tres grupos fosfato del ATP concentran una tremenda densidad de cargas negativas que se repelen entre sí y rechazan cualquier intento de aproximación.
Para neutralizar ese campo de repulsión, entra en juego el catión magnesio ($Mg^{2+}$). El magnesio forma un quelato con los átomos de oxígeno de los fosfatos beta y gamma del ATP, apantallando su carga negativa y orientando el fósforo en la geometría espacial idónea para que el grupo hidroxilo del carbono 6 de la glucosa ejecute un ataque nucleofílico certero.
El dilema del egoísmo y la generosidad: Hexoquinasas vs. Glucoquinasa
El organismo alberga cuatro variantes principales de esta enzima (isoenzimas), pero su distribución revela una división de tareas diseñada para salvar la vida en épocas de escasez:
- Las hexoquinasas "egoístas" (I, II y III):El freno de seguridad: Estas isoenzimas sufren retroinhibición por producto. Si la glucosa-6-fosfato (G-6-P) se acumula porque la célula ya tiene suficiente energía, la enzima se apaga sola, dejando el azúcar restante en la sangre para otros órganos.
- Se encuentran en los tejidos periféricos de alto consumo constante, como el cerebro y el músculo esquelético. Tienen una afinidad desmedida por la glucosa (con una constante de saturación $K_m$ menor a 0,1 mM). Dado que la glucosa en sangre normal oscila entre 4 y 5 mM, estas enzimas trabajan siempre al 100 % de su capacidad, garantizando que una neurona capture azúcar incluso si nos encontramos al borde de una hipoglucemia severa.
- La glucoquinasa o Hexoquinasa IV (El guardián hepático):El filtro post-comilona: Tras un banquete rico en carbohidratos, la glucosa sanguínea se dispara. Solo entonces la glucoquinasa despierta a toda máquina, retirando toneladas de glucosa de la circulación para derivarla a los almacenes de glucógeno. El hígado espera pacientemente a que los tejidos nobles hayan comido primero antes de acaparar los excedentes.
- Opera en los hepatocitos del hígado (y en las células beta del páncreas) con una lógica inversa. Su afinidad por la glucosa es bajísima ($K_m \approx 10\text{ mM}$), lo que significa que a concentraciones sanguíneas normales apenas se inmuta. Además, no se inhibe por la acumulación de G-6-P.
La salida secreta: Glucosa-6-fosfatasa
La mayoría de las células de nuestro cuerpo, una vez que fosforilan la glucosa, están condenadas a consumirla; carecen de una vía de escape. El músculo, por ejemplo, gasta todo lo que atrapa para su propia contracción.
El hígado, en cambio, tiene la responsabilidad de mantener estable la glucemia de todo el organismo. Cuando los niveles de azúcar caen horas después de una comida, los hepatocitos activan una enzima exclusiva anclada a la cara luminal del retículo endoplásmico: la glucosa-6-fosfatasa. Esta enzima retira el grupo fosfato mediante hidrólisis, restaurando la glucosa libre neutra que puede volver a deslizarse por los transportadores GLUT hacia el torrente sanguíneo para alimentar al cerebro.