

- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1579

Una célula viva jamás duerme. Incluso en el reposo más absoluto, su interior bulle en una frenética actividad donde miles de moléculas chocan, se transforman, se ensamblan y se incineran de forma coordinada. Para mantener este orden frente al caos, los organismos vivos dependen del flujo ininterrumpido de energía química. En los animales, el sol del sistema metabólico es un monosacárido de seis carbonos: la glucosa.
Lejos de ser un mero combustible que se quema al azar, el metabolismo de los hidratos de carbono funciona como una refinada red de transporte público interconectada. En ella, las rutas de degradación (catabolismo) y las de construcción (anabolismo) convergen en nodos comunes, permitiendo a la célula decidir en milisegundos si debe gastar energía de inmediato, guardarla en una cuenta de ahorros o desviar sus átomos para fabricar ADN o grasas.
Glucólisis: La fractura ancestral del azúcar
La ruta troncal del metabolismo energético es la glucólisis. Presente en prácticamente todos los seres vivos sobre la Tierra —desde las bacterias más primitivas hasta las neuronas de la corteza cerebral humana—, esta ruta de diez pasos bioquímicos opera en el citoplasma sin necesidad de oxígeno.
Durante la glucólisis, una molécula de glucosa se escinde enzimáticamente en dos fragmentos de tres carbonos: el piruvato. En este proceso de ruptura controlada, la célula atrapa una modesta ganancia neta de energía en forma de dos moléculas de ATP y dos de NADH. Es un botín energético pequeño comparado con el rendimiento total que encierran los enlaces de la glucosa, pero es extraordinariamente rápido y crucial: tejidos como los glóbulos rojos maduros (que carecen de mitocondrias) dependen exclusivamente de esta vía para mantenerse vivos.
Leer más: Introducción al metabolismo de los hidratos de carbono
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 882
Mucho antes de que la atmósfera terrestre se inundara de oxígeno tras la catástrofe fotosintética de las cianobacterias, las primeras formas de vida microscópicas ya resolvían un dilema termodinámico elemental: cómo arrancar energía útil de las moléculas orgánicas flotantes sin recurrir a la combustión aeróbica. La solución evolutiva a ese enigma fue la glucólisis (del griego glykys, dulce, y lysis, ruptura), una ruta de diez reacciones enzimáticas consecutivas localizada en el citosol celular.
Conocida formalmente en honor a los pioneros que descifraron su mecanismo como la ruta de Embden-Meyerhof-Parnas (EMP), este proceso es probablemente el fósil bioquímico más universal del planeta: desde una bacteria termófila hasta las neuronas del cerebro humano, todos los reinos biológicos ejecutan prácticamente las mismas transformaciones enzimáticas para degradar un azúcar de seis carbonos en dos fragmentos de tres.
La lógica química: Fracturar un hexágono para atrapar electrones
La glucólisis no busca desmantelar la glucosa por completo hasta convertirla en cenizas minerales; su objetivo es una oxidación parcial controlada. En este recorrido, una molécula de glucosa ($C_6H_{12}O_6$) se escinde enzimáticamente en dos moléculas de piruvato ($C_3H_3O_3^-$).
Durante este tránsito:
- La célula rescata aproximadamente el 5 % de la energía química total encerrada en los enlaces covalentes de la glucosa.
- Esta energía no se disipa en forma de calor destructivo; se canaliza inmediatamente en dos monedas metabólicas universales: dos moléculas de ATP (moneda de energía inmediata) y dos moléculas de NADH (poder reductor cargado de electrones de alta energía).
Aunque un rendimiento del 5 % parece modesto frente a la combustión completa, su velocidad es asombrosa: la glucólisis puede activarse y generar ATP cientos de veces más rápido que la respiración mitocondrial, convirtiéndose en el salvavidas energético en situaciones de emergencia funcional o en tejidos desprovistos de mitocondrias, como los glóbulos rojos maduros.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1035
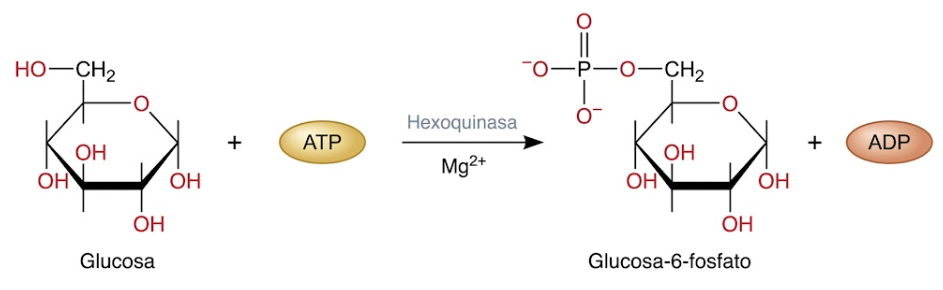
En cuanto una molécula de glucosa cruza la membrana celular, la célula le tiende una trampa bioquímica inmediata de la que no podrá escapar: le añade una etiqueta de fosfato. Esta primera reacción de la glucólisis no solo marca el punto de no retorno para el combustible, sino que ilustra una de las lecciones de reparto de recursos más fascinantes del cuerpo humano.
$$\text{Glucosa} + \text{ATP} \xrightarrow{\text{Hexoquinasa / Mg}^{2+}} \text{Glucosa-6-fosfato} + \text{ADP} + \text{H}^+$$
El cepo molecular: ¿Por qué fosforilar la glucosa?
La fosforilación en el carbono 6 de la glucosa cumple dos propósitos indispensables:
- El secuestro intracelular: La glucosa entra a la célula mediante proteínas de transporte facilitado (los transportadores GLUT), que solo reconocen moléculas neutras. Al transferirle un grupo fosfato cargado negativamente, la glucosa adquiere una fuerte carga eléctrica ($PO_4^{2-}$). La membrana lipídica hidrofóbica se vuelve completamente impermeable para ella y los transportadores GLUT ya no pueden expulsarla.
- La desestabilización química: La glucosa pura es una molécula químicamente dócil y poco reactiva. Al añadirle el fosfato mediante un enlace éster, la célula eleva su contenido energético libre, dejándola lista y tensionada para los cortes que vendrán más adelante en la ruta.
La reacción es termodinámicamente irreversible en el citoplasma: la liberación de energía que acompaña a la hidrólisis del ATP es tan acusada que la enzima es incapaz de acoplar el proceso en sentido inverso.
Leer más: Primera etapa de la glucólisis. Síntesis de la glucosa-6-fosfato
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1119
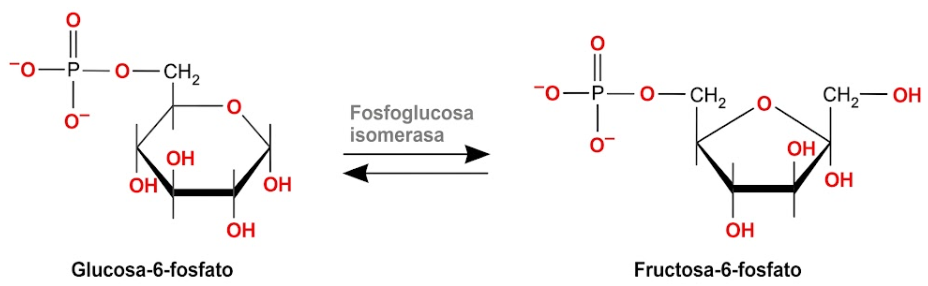
Tras atrapar a la molécula de glucosa con un candado de fosfato en el carbono 6, la célula se topa de inmediato con un obstáculo geométrico: la glucosa-6-fosfato es una aldosa (posee un grupo carbonilo en el extremo C-1) y adopta una estructura cíclica de seis miembros (anillo de piranosa). Si la célula intentara fracturar la molécula en este estado, una escisión aldólica produciría fragmentos desiguales de dos y cuatro carbonos, obligando al citoplasma a gestionar dos vías catabólicas distintas.
Para preparar un corte limpio y simétrico en dos mitades intercambiables de tres carbonos, entra en acción la segunda enzima de la ruta: la fosfoglucosa isomerasa (PGI), también conocida como fosfohexosa isomerasa.
$$\text{Glucosa-6-fosfato (G-6-P)} \xrightleftharpoons{\text{Fosfoglucosa isomerasa}} \text{Fructosa-6-fosfato (F-6-P)}$$
La lógica estratégica: Dos jugadas maestras en un solo movimiento
Esta isomerización de una aldosa en una cetosa no es un capricho estético; es una maniobra de preparación mecánica indispensable para los dos pasos subsiguientes:
- Despejar la pista para la Reacción 3 (El C-1 queda libre): En la glucosa-6-fosfato cíclica, el carbono 1 forma parte del enlace hemiacetal que cierra el anillo, lo que impide anclarle un grupo fosfato. Al trasladar el grupo carbonilo al carbono 2, el carbono 1 se convierte en un alcohol primario libre ($-CH_2OH$) que asoma fuera del anillo, listo para ser fosforilado en el siguiente paso por la fosfofructoquinasa-1 (PFK-1).
- Garantizar la simetría para la Reacción 4 (La fractura por aldolasa): La escisión aldólica rompe siempre el enlace adyacente a un grupo carbonilo (rotura $\alpha,\beta$). Al ubicar la cetona en el carbono 2, la cuchilla enzimática de la aldolasa cortará exactamente entre el C-3 y el C-4, rindiendo dos triosas fosforiladas de tres carbonos gemelas o fácilmente interconvertibles: el gliceraldehído-3-fosfato y la dihidroxiacetona fosfato.
Leer más: Segunda etapa de la glucólisis. Conversión de la glucosa-6-fosfato en fructosa-6-fosfato.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1355
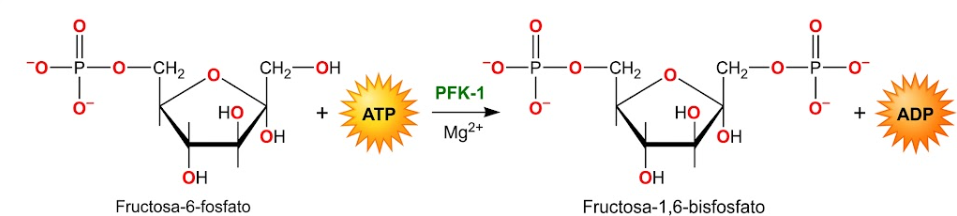
Si la primera fosforilación de la glucosa fue una trampa para retener el combustible dentro de la célula, la Reacción 3 es la firma del contrato: una vez que una molécula de azúcar supera este paso, ya no hay vuelta atrás. La glucosa-6-fosfato aún podía desviarse hacia la síntesis de glucógeno o adentrarse en la ruta de las pentosas fosfato para fabricar nucleótidos; sin embargo, cuando la enzima fosfofructoquinasa-1 (PFK-1) entra en acción, el destino del azúcar queda sellado exclusivamente hacia su combustión glucolítica.
$$\text{Fructosa-6-fosfato} + \text{ATP} \xrightarrow{\text{PFK-1 / Mg}^{2+}} \text{Fructosa-1,6-bisfosfato} + \text{ADP} + \text{H}^+$$
La inversión del segundo ATP: Simetría y confinamiento
Gastar una segunda molécula de ATP cuando la célula pretende obtener energía parece un contrasentido contable, pero responde a dos imperativos biofísicos determinantes:
- El declive termodinámico irreversible: La transferencia del grupo fosforilo desde el ATP al hidroxilo del carbono 1 de la fructosa libera una enorme cantidad de energía libre ($\Delta G^{\circ\prime} \approx -14{,}2\text{ kJ/mol}$). Este desnivel térmico convierte a la reacción en un canal unidireccional bajo condiciones fisiológicas: la PFK-1 empuja el flujo metabólico con una fuerza que impide el retroceso.
- Bisfosfato, no difosfato (El truco de las dos anclas): En bioquímica, el prefijo di- se reserva para fosfatos unidos entre sí en serie (como en el ADP), mientras que bis- designa dos fosfatos anclados en carbonos completamente independientes. Al colocar un fosfato en el carbono 1 y conservar el previo en el carbono 6, la molécula adquiere dos polos cargados negativamente. Cuando la enzima aldolasa parta este azúcar en dos mitades en el siguiente paso, ambas triosas resultantes conservarán un grupo fosfato. Ninguna de las dos mitades podrá deslizarse fuera de la célula ni requerirá un gasto energético extra para quedar confinada en el citosol.
Leer más: Tercera etapa de la glucólisis. Fosforilación de la fructosa-6-fosfato.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 936
Tras haber invertido dos moléculas de ATP y reorganizado los enlaces en los pasos previos, la célula llega al desenlace de la primera fase de la glucólisis. La molécula de fructosa-1,6-bisfosfato está cargada negativamente en ambos extremos, tensionada y perfectamente alineada. Es el momento de dejar caer la cuchilla enzimática: la aldolasa (formalmente, fructosa-1,6-bisfosfato aldolasa) parte este esqueleto de seis carbonos en dos fragmentos de tres carbonos.
$$\text{Fructosa-1,6-bisfosfato} \xrightleftharpoons{\text{Aldolasa}} \text{Dihidroxiacetona fosfato (DHAP)} + \text{Gliceraldehído-3-fosfato (G-3-P)}$$
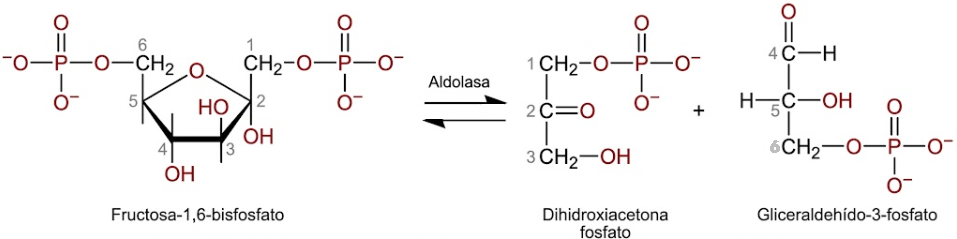
Esta reacción es una escisión aldólica retroactiva (el proceso químicamente inverso a una condensación aldólica). En ella, el hexágono original rinde dos triosas fosfato funcionalmente distintas: una cetosa (dihidroxiacetona fosfato) y una aldosa (gliceraldehído-3-fosfato).
Leer más: Cuarta etapa de la glucólisis. Escisión de la fructosa-1,6-bisfosfato.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1084
Tras la fractura ejecutada por la aldolasa en el paso anterior, la célula se encuentra ante un dilema logístico crítico. Ha invertido dos moléculas de ATP y ha roto una hexosa en dos fragmentos de tres carbonos, pero los productos obtenidos son desiguales: una molécula de gliceraldehído-3-fosfato (G-3-P) y una de dihidroxiacetona fosfato (DHAP).
La maquinaria de la segunda fase de la glucólisis —diseñada para cosechar energía— solo admite como combustible al G-3-P. Si la célula no pudiera aprovechar la DHAP, la mitad de los carbonos de la glucosa y la mitad de la energía invertida se perderían irremediablemente. Para rescatar este fragmento entra en juego la quinta enzima de la ruta: la triosa fosfato isomerasa (TIM).
$$\text{Dihidroxiacetona fosfato (DHAP)} \xrightleftharpoons{\text{Triosa fosfato isomerasa (TIM)}} \text{Gliceraldehído-3-fosfato (G-3-P)}$$
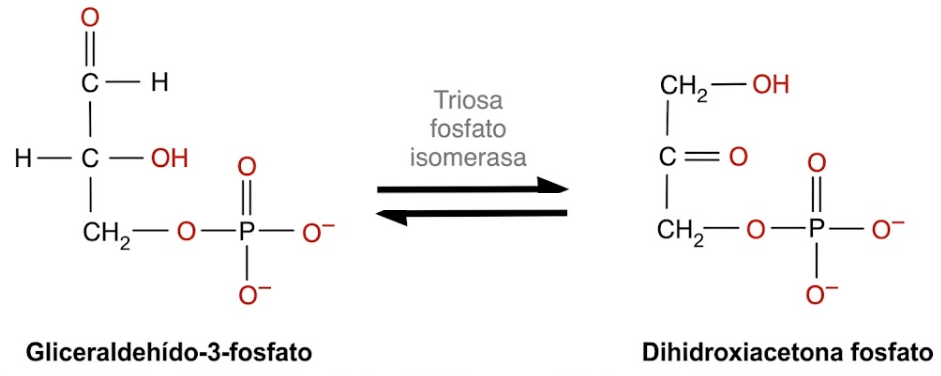
Con esta simple conversión intramolecular, la molécula original de glucosa queda oficialmente duplicada en dos moléculas idénticas de G-3-P, listas para alimentar la fase de rendimiento.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1020
La sexta etapa de la glucólisis marca el inicio oficial de la fase de rendimiento o cosecha: tras haber gastado dos moléculas de ATP en la preparación del azúcar, la célula comienza por fin a recolectar beneficios. En esta reacción, la enzima gliceraldehído-3-fosfato deshidrogenasa (GAPDH) ejecuta dos tareas formidables en un único movimiento: oxida el grupo aldehído del azúcar extrayendo electrones de alta energía y acopla un grupo fosfato libre sin consumir una sola molécula de ATP.
$$\text{Gliceraldehído-3-fosfato} + \text{NAD}^+ + \text{P}_i \xrightleftharpoons{\text{GAPDH}} \text{1,3-Bisfosfoglicerato} + \text{NADH} + \text{H}^+$$
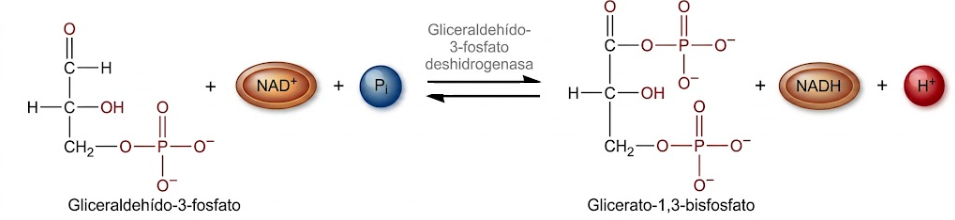
Dado que cada molécula de glucosa original se escindió en dos triosas, esta reacción ocurre por duplicado para cada hexosa que ingresa en la ruta.
Leer más: Sexta etapa de la glucólisis. Oxidación del gliceraldehído-3-fosfato.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 787
Tras seis reacciones de gasto e ingeniería molecular, la glucólisis alcanza su esperado punto de retorno de inversión (break-even point). La enzima fosfoglicerato quinasa (PGK) toma el 1,3-bisfosfoglicerato (1,3-BPG) recién salido de la reacción 6 y transfiere su grupo fosfato de alta energía directamente a una molécula de difosfato de adenosina (ADP).
$$\text{1,3-Bisfosfoglicerato} + \text{ADP} \xrightleftharpoons{\text{Fosfoglicerato quinasa / Mg}^{2+}} \text{3-Fosfoglicerato} + \text{ATP}$$
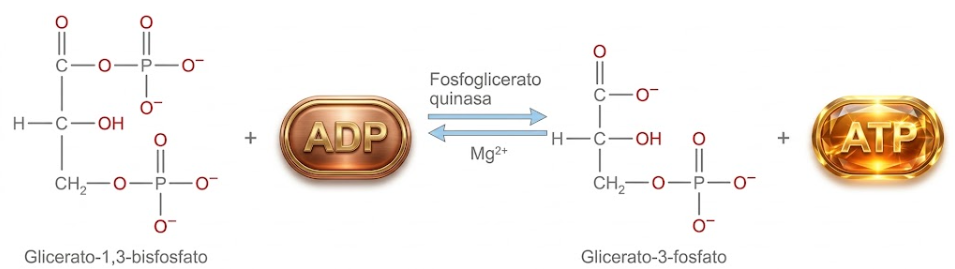
Al ejecutarse por duplicado para cada una de las dos triosas nacidas de la glucosa original, esta reacción genera dos moléculas de ATP. Con este paso, la célula cancela la deuda contraída en las reacciones 1 y 3: el balance neto de energía se sitúa exactamente en cero. Todo el ATP que se fabrique a partir de aquí representará beneficio industrial limpio.
Leer más: Séptima etapa de la glucólisis. Transferencia del grupo fosforilo.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 729
Tras cobrar los primeros dividendos de ATP en la reacción de la fosfoglicerato quinasa, la célula se queda en el citosol con una molécula de 3-fosfoglicerato (3-PG). Aunque todavía porta un átomo de fósforo, el 3-PG se encuentra en un callejón sin salida energético: su grupo fosfato está anclado a un alcohol primario mediante un enlace fosfoéster ordinario de baja energía ($\Delta G^{\circ\prime} \approx -12{,}6\text{ kJ/mol}$).
Dado que sintetizar una molécula de ATP a partir de ADP exige un peaje termodinámico de $+30{,}5\text{ kJ/mol}$, el 3-PG es incapaz de transferir directamente su fosfato. Para extraer la última tanda de energía neta de la glucólisis, la célula necesita convertir este compuesto dócil en fosfoenolpiruvato (PEP), una supermolécula con un potencial de transferencia de fosforilo insólito ($\Delta G^{\circ\prime} \approx -58{,}6\text{ kJ/mol}$).
El primer paso de esta metamorfosis no consiste en retirar átomos, sino en una maniobra de recolocación geométrica: la fosfoglicerato mutasa (PGM) muda el grupo fosfato del carbono 3 al carbono 2.
$$\text{3-Fosfoglicerato} \xrightleftharpoons{\text{Fosfoglicerato mutasa}} \text{2-Fosfoglicerato}$$
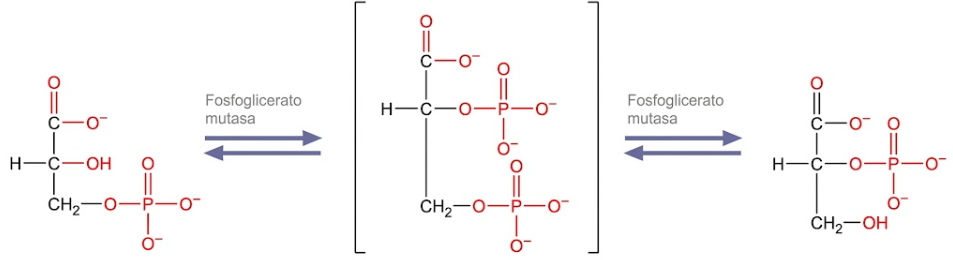
La lógica del cambio: Preparar la catapulta de la enolasa
A simple vista, mover un grupo funcional de un carbono a su vecino parece una sutileza irrelevante. Sin embargo, en bioquímica la posición lo es todo:
- En el carbono 3, el fosfato está demasiado lejos del grupo carboxilo (C-1) y blindado contra cualquier deshidratación útil.
- Al desplazarlo al carbono 2, el fosfato queda situado justo al lado del carboxilo y deja libre el grupo hidroxilo del C-3.
Esta reorganización es el requisito físico indispensable para el paso 9: la enzima enolasa podrá retirar una molécula de agua entre el C-2 y el C-3, introduciendo un doble enlace carbono-carbono que dejará al fosfato atrapado en una conformación inestable de altísima tensión electrónica. La mutasa no genera energía por sí misma, pero coloca la mecha en el barril de pólvora.
Leer más: Octava etapa de la glucólisis. Interconversión del 3-fosfoglicerato y 2-fosfoglicerato
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 830
Trasladar el grupo fosfato del carbono 3 al carbono 2 en el paso anterior parecía una simple mudanza de oficina. Sin embargo, en la Reacción 9, esa reubicación revela su auténtico propósito biofísico: la enzima enolasa (o fosfopiruvato hidratasa) retira una molécula de agua del 2-fosfoglicerato, transformando un compuesto dócil en el metabolito fosforilado con mayor energía de toda la biología celular: el fosfoenolpiruvato (PEP).
$$\text{2-Fosfoglicerato} \xrightleftharpoons{\text{Enolasa / Mg}^{2+}} \text{Fosfoenolpiruvato (PEP)} + \text{H}_2\text{O}$$
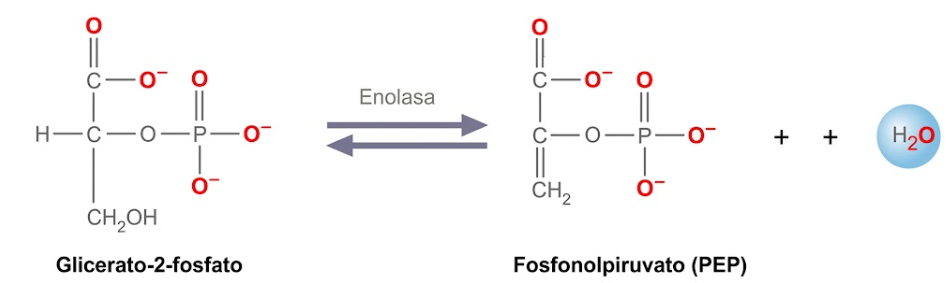
La redistribución de la energía: Crear un volcán sin añadir calor
Curiosamente, el cambio de energía libre estándar de esta reacción es modesto ($\Delta G^{\circ\prime} \approx +1{,}8\text{ kJ/mol}$) y transcurre en equilibrio reversible en el citoplasma. La enolasa no añade energía externa al sistema; lo que hace es redistribuir drásticamente la energía interna de la molécula:
- La energía libre estándar de hidrólisis del 2-fosfoglicerato ronda unos discretos $-12{,}6\text{ kJ/mol}$ (un éster fosfato convencional).
- Al deshidratar la molécula, el potencial de transferencia de fosforilo del fosfoenolpiruvato se dispara hasta los $-61{,}9\text{ kJ/mol}$ (casi el doble que el del propio ATP, que se sitúa en $-30{,}5\text{ kJ/mol}$).
Leer más: Novena etapa de la glucólisis. Deshidratación del 2-fosfoglicerato.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 850
En la reacción anterior, la enolasa dejó el escenario preparado con precisión quirúrgica: secuestró a la molécula en una forma enólica artificial y comprimió un resorte de altísima inestabilidad electrónica tras el escudo de un grupo fosfato. En esta décima y última etapa, la célula retira el seguro del percutor: la enzima piruvato quinasa (PK) transfiere el fosfato del fosfoenolpiruvato (PEP) directamente al ADP, completando la segunda fosforilación a nivel de sustrato y clausurando la ruta con una cascada termodinámica arrolladora.
$$\text{Fosfoenolpiruvato} + \text{ADP} + \text{H}^+ \xrightarrow{\text{Piruvato quinasa / Mg}^{2+}, \text{K}^+} \text{Piruvato} + \text{ATP}$$
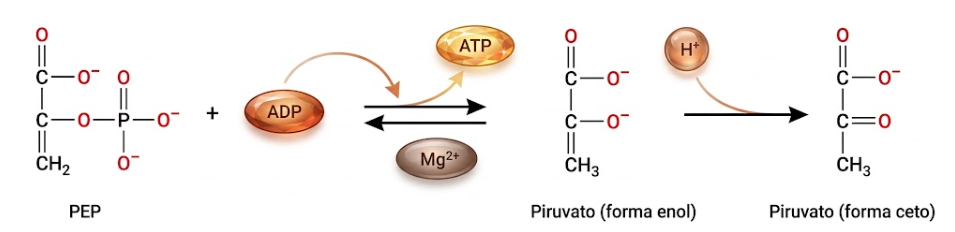
Al igual que en las etapas previas de la fase de cosecha, la reacción se ejecuta dos veces por cada molécula de glucosa original, generando dos moléculas de ATP y dejando el balance energético neto de la glucólisis en números verdes.
Leer más: Décima etapa de la glucólisis. Síntesis de piruvato.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 3024
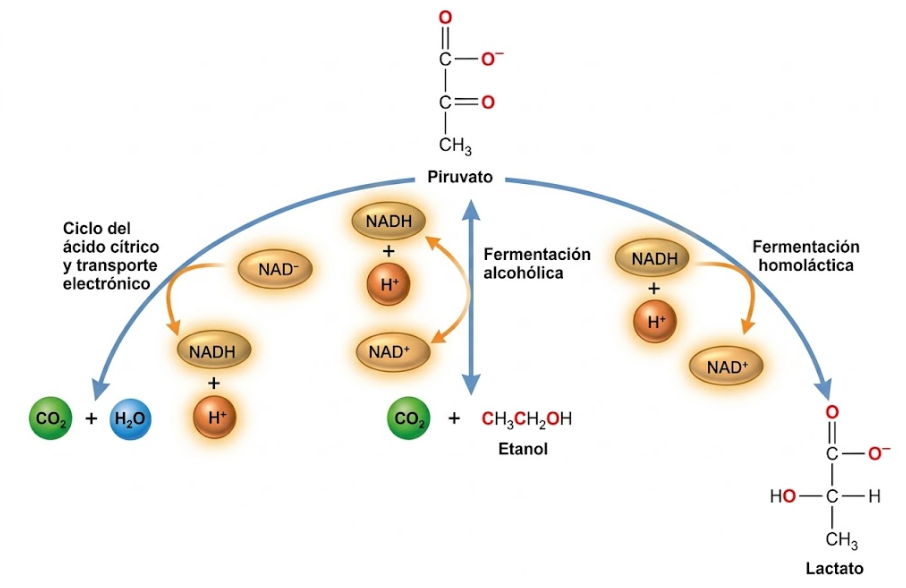
Al terminar los diez pasos de la glucólisis, la célula ha extraído apenas una fracción modesta del potencial químico encerrado en la glucosa: dos moléculas de ATP y dos de NADH. El residuo carbonado de esta ruptura son dos moléculas de piruvato ($C_3H_4O_3$). Lejos de ser ceniza metabólica inerte, el piruvato se encuentra en un estado de reducción intermedio; sus enlaces covalentes conservan más del 90 % de la energía libre estándar de combustión del azúcar original.
Sin embargo, el piruvato no puede decidir su destino por sí solo. Se encuentra ante una bifurcación metabólica crítica que depende exclusivamente de una variable ambiental: la presencia o ausencia de oxígeno molecular ($O_2$).
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1562
Al observar las diez reacciones de la glucólisis en una tabla de química estándar, cualquier estudiante de termodinámica se llevaría las manos a la cabeza. La escisión de la aldolasa (Reacción 4) tiene una variación de energía libre estándar fuertemente positiva ($\Delta G^{\circ\prime} = +23{,}8\text{ kJ/mol}$), la triosa fosfato isomerasa (Reacción 5) marca $+7{,}5\text{ kJ/mol}$ y la oxidación de la GAPDH (Reacción 6) suma otros $+6{,}3\text{ kJ/mol}$. Si la célula fuera un vaso de precipitados en condiciones estándar, la glucólisis jamás avanzaría: se atascaría en una subida energética imposible.
El error radica en evaluar la vida bajo las condiciones artificiales del laboratorio químico (concentraciones $1\text{ M}$ de todos los reactivos y productos, $25\text{ }^\circ\text{C}$ y $\text{pH } 7{,}0$). Una célula viva con metabolitos a concentración $1\text{ M}$ no sería un organismo; sería un cristal sólido deshidratado. Para comprender por qué la glucólisis corre como un torrente continuo hacia el piruvato, la bioenergética debe calcular la variación de energía libre real ($\Delta G$) dentro del citoplasma.
La corrección biofísica: La ecuación de Gibbs en el eritrocito
El cambio real de energía libre dentro de una célula viva depende de la relación estricta entre reactivos y productos a través de la ecuación:
$$\Delta G = \Delta G^{\circ\prime} + RT \ln Q \quad \text{donde} \quad Q = \frac{[\text{productos}]}{[\text{reactivos}]}$$
Cuando se miden las concentraciones intracelulares reales de los metabolitos —empleando como modelo fisiológico de referencia el eritrocito humano—, el caos termodinámico aparente desaparece y revela una arquitectura fluídica magistral:
| Paso | Enzima | ΔG∘′ (kJ/mol) | ΔG real eritrocito (kJ/mol) | Estado termodinámico |
| 1 | Hexoquinasa | $-16{,}7$ | $-33{,}4$ | Irreversible (Presa 1) |
| 2 | Fosfoglucosa isomerasa | $+1{,}7$ | $-2{,}5$ | Cerca del equilibrio |
| 3 | Fosfofructoquinasa-1 (PFK-1) | $-14{,}2$ | $-22{,}2$ | Irreversible (Presa 2) |
| 4 | Aldolasa | $+23{,}8$ | $-1{,}3$ | Cerca del equilibrio |
| 5 | Triosa fosfato isomerasa | $+7{,}5$ | $+2{,}4$ | Cerca del equilibrio |
| 6 | GAPDH | $+6{,}3$ | $-1{,}7$ | Cerca del equilibrio |
| 7 | Fosfoglicerato quinasa | $-18{,}5$ | $+1{,}3$ | Cerca del equilibrio |
| 8 | Fosfoglicerato mutasa | $+4{,}4$ | $-0{,}8$ | Cerca del equilibrio |
| 9 | Enolasa | $+1{,}8$ | $-3{,}3$ | Cerca del equilibrio |
| 10 | Piruvato quinasa | $-31{,}4$ | $-16{,}7$ | Irreversible (Presa 3) |
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 5471
La glucólisis, esencial para la vida celular, convierte la glucosa en piruvato, generando energía (ATP) y precursores metabólicos. Este proceso no solo es vital para la producción energética sino que también juega un rol importante en la síntesis de numerosos metabolitos. Dada su importancia, la regulación de la glucólisis es sumamente compleja y finamente ajustada.
El control de la velocidad de la glucólisis se ejerce principalmente a través de la regulación alostérica de tres enzimas críticas: la hexoquinasa, la fosfofructoquinasa-1 (PFK-1) y la piruvato quinasa. Estas enzimas catalizan reacciones esencialmente irreversibles, actuando como guardianes que regulan el flujo de glucosa a través de esta vía metabólica.
Los reguladores alostéricos, que son moléculas cuyas concentraciones reflejan el estado metabólico celular, juegan un papel central en este mecanismo de control. Estos efectores pueden activar o inhibir las enzimas clave, ajustando así la tasa de glucólisis según las necesidades energéticas y metabólicas de la célula.
Por ejemplo, la hexoquinasa, que inicia el proceso glucolítico, se inhibe por su producto, la glucosa-6-fosfato. Esta retroalimentación negativa previene la acumulación innecesaria de intermediarios glucolíticos cuando la célula tiene suficiente glucosa.
Además, la presencia de AMP, que señaliza bajos niveles de energía celular, activa la PFK-1 y la piruvato quinasa, estimulando la glucólisis para generar ATP. En contraste, altas concentraciones de ATP indican que la célula tiene suficiente energía, lo que resulta en la inhibición de estas enzimas y, por lo tanto, en una desaceleración de la glucólisis.
Otros metabolitos como el citrato y la acetil-CoA, que se acumulan durante períodos de abundancia energética, inhiben la PFK-1 y la piruvato quinasa respectivamente, ejerciendo un control adicional sobre la glucólisis.
Un mecanismo interesante de regulación es el papel de la fructosa-2,6-bisfosfato, que activa la PFK-1. Esta molécula es producida en respuesta a señales hormonales que indican altas concentraciones de glucosa en la sangre, promoviendo así la glucólisis cuando hay glucosa disponible. Además, la acumulación de fructosa-1,6-bisfosfato actúa como un activador alostérico de la piruvato quinasa, proporcionando un mecanismo de retroalimentación positiva que asegura la continuación eficiente de la glucólisis una vez iniciada.
Este delicado equilibrio de activadores e inhibidores asegura que la glucólisis se ajuste dinámicamente a las condiciones celulares, optimizando la generación de energía y la síntesis de metabolitos necesarios para el crecimiento y la supervivencia celular. La capacidad de la célula para regular finamente este proceso metabólico fundamental destaca la complejidad y la eficiencia de los sistemas biológicos.
¿Qué es la regulación alostérica?
La regulación alostérica es un mecanismo de control enzimático que modifica la actividad de una enzima mediante la unión de una molécula reguladora (efector alostérico) en un sitio específico de la enzima, distinto del sitio activo donde se unen los sustratos. Este sitio específico se conoce como sitio alostérico. La unión del efector alostérico induce un cambio conformacional en la estructura terciaria o cuaternaria de la enzima, lo que puede aumentar (activación alostérica) o disminuir (inhibición alostérica) su actividad catalítica.
La regulación alostérica permite a las células ajustar finamente las velocidades de las reacciones metabólicas en respuesta a cambios en el ambiente interno o externo, lo que facilita la homeostasis y la respuesta a condiciones metabólicas cambiantes. Los efectores alostéricos pueden ser productos finales de una vía metabólica (feedback negativo o retroalimentación negativa), precursores, metabolitos intermediarios, iones o incluso otras proteínas o moléculas señalizadoras.
Este tipo de regulación es fundamental en vías metabólicas críticas, como la glucólisis y la síntesis de ácidos nucleicos y proteínas, ya que permite una respuesta coordinada y adaptativa de la célula a sus necesidades energéticas y constructivas. La regulación alostérica asegura que las rutas metabólicas sean eficientes y se activen o desactiven según sea necesario, evitando la sobreproducción o escasez de compuestos esenciales.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 1
Cuando el cuerpo humano agota sus provisiones inmediatas de carbohidratos, el metabolismo no se rinde. Si la glucólisis es el proceso de fracturar la glucosa para extraer energía rápida, la gluconeogénesis es su contraparte biosintética: la síntesis de novo de moléculas de glucosa a partir de precursores que no son hidratos de carbono.
Lejos de ser un mero capricho bioquímico, esta ruta es un seguro de vida evolutivo indispensable. Mientras que la mayoría de los tejidos periféricos pueden adaptarse fácilmente a quemar ácidos grasos cuando escasea el alimento, existen dos órganos nobles que imponen una servidumbre absoluta a la glucosa:
- Los eritrocitos (glóbulos rojos): Al carecer por completo de mitocondrias, no pueden realizar fosforilación oxidativa ni oxidar lípidos. Su supervivencia depende al 100 % de la glucólisis citoplásmica.
- El cerebro y el sistema nervioso central: La barrera hematoencefálica restringe el paso libre de los ácidos grasos de cadena larga. Aunque en periodos de inanición prolongada el tejido cerebral puede adaptarse a consumir cuerpos cetónicos (acetoacetato y $\beta$-hidroxibutirato) para cubrir hasta dos tercios de su cuota energética, sigue necesitando un suministro continuo y obligatorio de glucosa para mantener el potencial de membrana y el metabolismo de neurotransmisores.
Los centros de producción: La factoría hepática y el auxilio renal
La maquinaria gluconeogénica no está distribuida de forma homogénea por todo el cuerpo; se concentra de forma casi exclusiva en dos órganos estratégicos:
- El hígado (El suministrador universal): Asume más del 90 % de la producción gluconeogénica en periodos de ayuno habitual. El glucógeno hepático (unos 100 g en un adulto sano) se vacía en cuestión de 12 a 18 horas; a partir de ese momento, la gluconeogénesis hepática toma el relevo como la principal fuente de glucosa circulante.
- La corteza renal (El refuerzo en crisis): En condiciones normales genera una fracción modesta (alrededor del 10 %), pero su papel se dispara en dos circunstancias críticas:
- Inanición extrema: Puede llegar a cubrir hasta el 40-50 % de la glucosa nueva.
- Acidosis metabólica: El riñón capta glutamina y otros aminoácidos, desaminándolos para generar amoníaco ($NH_3$) —que amortigua y excreta protones en la orina—, mientras los esqueletos carbonados resultantes ($\alpha$-cetoglutarato) se canalizan directamente hacia la síntesis de glucosa.
El músculo esquelético, a pesar de acumular unas cuatro veces más glucógeno que el hígado, es metabólicamente egoísta: carece de la enzima glucosa-6-fosfatasa, lo que le impide exportar glucosa libre a la sangre para abastecer a otros órganos.
La cantera no glucídica: Las cuatro materias primas
La célula ensambla glucosa nueva a partir de cuatro sustratos principales que no provienen de los azúcares:
- Lactato (El reciclaje del esfuerzo): Generado por los eritrocitos o por el músculo esquelético durante el ejercicio anaeróbico vigoroso. Viaja por la sangre hasta el hígado, donde la lactato deshidrogenasa lo reoxida a piruvato para iniciar la síntesis de glucosa (ciclo de Cori).
- Aminoácidos glucogénicos y $\alpha$-cetoácidos: Durante el ayuno, la degradación de proteínas musculares libera aminoácidos a la circulación. El más importante es la alanina, que se transporta al hígado y se transamina directamente en piruvato (ciclo de la glucosa-alanina o ciclo de Cahill). Otros aminoácidos rinden intermediarios del ciclo de Krebs ($\alpha$-cetoglutarato, succinil-CoA, fumarato, oxalacetato) que convergen en la misma vía.
- Glicerol (El rescate de los lípidos): Procede de la hidrólisis de los triglicéridos en el tejido adiposo durante la lipólisis. Los ácidos grasos se oxidan para dar energía, pero su esqueleto de glicerol viaja al hígado, donde se fosforila a glicerol-3-fosfato y se oxida a dihidroxiacetona fosfato (DHAP), entrando directamente en la mitad superior de la ruta.
- Piruvato: El metabolito bisagra originado a partir del lactato o de la transaminación de aminoácidos.
(Nota biofísica clave: Los animales no pueden convertir ácidos grasos de número par de carbonos en glucosa neta, porque la reacción de la piruvato deshidrogenasa es irreversible y los dos carbonos que entran al ciclo de Krebs como acetil-CoA se pierden íntegramente como dos moléculas de $CO_2$ antes de llegar al oxalacetato).
La gluconeogénesis no es, por tanto, una inversión simétrica de la glucólisis, sino un complejo rescate energético donde el organismo moviliza sus reservas musculares y grasas para proteger la función de sus tejidos más vulnerables.
- Detalles
- Escrito por: Germán Fernández
- Categoría: Metabolismo de los hidratos de carbono
- Visitas: 2
Para fabricar glucosa a partir de piruvato, el hepatocito no puede limitarse a pasar la película de la glucólisis marcha atrás. Siete de los diez pasos glucolíticos operan en un equilibrio químico cercano a cero y son catalizados bidireccionalmente por las mismas enzimas; sin embargo, las tres reacciones irreversibles (la hexoquinasa, la fosfofructoquinasa-1 y la piruvato quinasa) representan caídas termodinámicas tan abruptas que intentar revertirlas directamente requeriría un aporte de energía libre inalcanzable.
La gluconeogénesis resuelve este dilema mediante tres circunvalaciones enzimáticas (o rodeos) gobernadas por cuatro enzimas exclusivas, transformando una subida termodinámica imposible en una ruta neta fuertemente exergónica.
Primer rodeo: De piruvato a fosfoenolpiruvato (El desvío mitocondrial en dos tiempos)
Revertir la reacción de la piruvato quinasa exige sortear una caída de más de $-31\text{ kJ/mol}$. Para salvar semejante desnivel, la célula divide la tarea entre la mitocondria y el citoplasma:
- Paso A (Carboxilación mitocondrial): El piruvato entra a la matriz mitocondrial, donde la enzima piruvato carboxilasa —que utiliza biotina (vitamina B7) como brazo articulado y consume una molécula de ATP— fija una molécula de bicarbonato ($HCO_3^-$) al piruvato (3 carbonos) para sintetizar oxalacetato (OAA, 4 carbonos).Esta enzima tiene un requisito alostérico absoluto: solo funciona en presencia de acetil-CoA. Si la concentración de acetil-CoA es alta, avisa a la mitocondria de que hay suficiente combustible lipídico y que el piruvato debe redirigirse hacia la fabricación de azúcar.
- $$\text{Piruvato} + \text{HCO}_3^- + \text{ATP} \xrightarrow{\text{Piruvato carboxilasa}} \text{Oxalacetato} + \text{ADP} + \text{P}_i$$
- El dilema del oxalacetato y la lanzadera de malato: El oxalacetato recién formado debe llegar al citoplasma, pero la membrana mitocondrial interna es completamente impermeable a él (carece de transportador específico). Para franquearla, la malato deshidrogenasa mitocondrial reduce el oxalacetato a malato consumiendo un NADH. El malato cruza al citosol a través del transportador de dicarboxilatos y, una vez allí, la malato deshidrogenasa citoplásmica lo reoxida a oxalacetato, regenerando el NADH. Esta maniobra tiene una trascendencia bioenergética colosal: exporta poder reductor (NADH) al citoplasma, indispensable para que la reacción de la GAPDH funcione en sentido inverso unos pasos más adelante.
- Paso B (Descarboxilación y fosforilación): Ya en el citosol (y parcialmente en la mitocondria en humanos), la enzima fosfoenolpiruvato carboxiquinasa (PEPCK) descarboxila el oxalacetato liberando la molécula de $CO_2$ que se añadió en el paso previo y consume una molécula de GTP para soldar el grupo fosfato, forjando finalmente el fosfoenolpiruvato (PEP).
- $$\text{Oxalacetato} + \text{GTP} \xrightarrow{\text{PEPCK}} \text{Fosfoenolpiruvato} + \text{GDP} + \text{CO}_2$$
Segundo rodeo: De fructosa-1,6-bisfosfato a fructosa-6-fosfato (La compuerta de FBPasa-1)
Una vez que el PEP asciende por las enzimas reversibles de la glucólisis, se topa con el segundo muro: la reacción irreversible de la PFK-1. La gluconeogénesis no intenta sintetizar ATP a partir de este metabolito; en su lugar, utiliza una simple hidrólisis catalizada por la fructosa-1,6-bisfosfatasa (FBPasa-1):
$$\text{Fructosa-1,6-bisfosfato} + \text{H}_2\text{O} \xrightarrow{\text{FBPasa-1}} \text{Fructosa-6-fosfato} + \text{P}_i$$
Esta reacción es fuertemente exergónica ($\Delta G^{\circ\prime} = -16{,}7\text{ kJ/mol}$) y se comporta como una válvula de no retorno. La FBPasa-1 es una enzima alostérica estrictamente coordinada con la PFK-1:
- Activadores: El citrato estimula su actividad, señalando abundancia de precursores en el ciclo de Krebs.
- Inhibidores: El AMP (indicador de agotamiento energético) y la fructosa-2,6-bisfosfato ($F\text{-}2,6\text{-BP}$) apagan la enzima. Cuando los niveles de $F\text{-}2,6\text{-BP}$ caen por efecto del glucagón durante el ayuno, el freno sobre la FBPasa-1 se retira y el flujo gluconeogénico se dispara.
Tercer rodeo: De glucosa-6-fosfato a glucosa libre (El cerrojo hepático)
Tras isomerizarse la fructosa-6-fosfato en glucosa-6-fosfato (G-6-P), la célula debe liberar el azúcar neutro al torrente sanguíneo, eludiendo la presa de la hexoquinasa. Este paso final lo ejecuta la glucosa-6-fosfatasa:
$$\text{Glucosa-6-fosfato} + \text{H}_2\text{O} \xrightarrow{\text{Glucosa-6-fosfatasa}} \text{D-Glucosa} + \text{P}_i$$
Esta enzima es un complejo multiproteico anclado a la membrana del retículo endoplásmico (RE) de los hepatocitos y las células de la corteza renal:
- La G-6-P es transportada al interior del lumen del RE por un transportador específico (T1).
- En la cara luminal, la fosfatasa escinde el grupo fosfato, generando glucosa libre y fosfato inorgánico.
- La glucosa y el fosfato son devueltos al citoplasma mediante transportadores independientes (T2 y T3), y la glucosa abandona la célula hacia los capilares a través del transportador GLUT2.
El confinamiento en el lumen del RE evita que la glucosa libre recién sintetizada vuelva a ser capturada y fosforilada indiscriminadamente por la hexoquinasa o glucoquinasa en el citoplasma. El músculo esquelético carece de esta enzima, lo que le impide exportar glucosa y lo condena a consumir internamente toda su reserva.
Ciclos de sustrato: La aparente futilidad convertida en amplificador cinético
El emparejamiento de dos reacciones irreversibles de sentido opuesto (como PFK-1 frente a FBPasa-1, o la glucoquinasa frente a la glucosa-6-fosfatasa) se denominó históricamente «ciclo fútil», bajo la asunción de que degradar y sintetizar el mismo compuesto simultáneamente era un mero desperdicio de ATP que generaba calor.
Sin embargo, estos ciclos de sustrato son mecanismos de control de flujo extraordinariamente sensibles:
- Si una enzima opera a una velocidad de 100 y la opuesta a 90, el flujo neto hacia adelante es de 10.
- Si una señal alostérica o una cascada hormonal altera mínimamente ambas actividades (por ejemplo, aumentando la primera a 120 y reduciendo la segunda a 70), el flujo neto salta de 10 a 50: ¡un aumento del 500 % en el flujo neto ante una variación modesta en la actividad enzimática individual!
El gasto energético derivado de mantener activas ambas enzimas de forma basal actúa como el peaje que paga la célula para obtener una capacidad de respuesta casi instantánea ante cualquier cambio en el estado metabólico.
La auditoría energética: El coste de no rendirse
Sintetizar glucosa nueva es un proceso termodinámicamente gravoso. Para transformar dos moléculas de piruvato en una molécula de glucosa, la célula debe pagar un peaje de seis enlaces fosfato de alta energía:
$$\begin{aligned} 2\,\text{Piruvato} &+ 4\,\text{ATP} + 2\,\text{GTP} + 2\,\text{NADH} + 2\,\text{H}^+ + 4\,\text{H}_2\text{O} \longrightarrow \\ &\text{D-Glucosa} + 4\,\text{ADP} + 2\,\text{GDP} + 6\,\text{P}_i + 2\,\text{NAD}^+ \end{aligned}$$
- 2 ATP consumidos por la piruvato carboxilasa (mitocondria).
- 2 GTP consumidos por la PEPCK (citoplasma/mitocondria).
- 2 ATP consumidos por la fosfoglicerato quinasa al invertir el paso 7 de la glucólisis.
- 2 NADH oxidados por la GAPDH citoplásmica al invertir el paso 6.
La glucólisis rinde únicamente 2 ATP, mientras que la gluconeogénesis consume el equivalente a 6 ATP. Ese déficit neto de 4 enlaces fosfato por cada vuelta es el precio termodinámico que paga el organismo para garantizar que tanto la degradación como la síntesis de glucosa sean procesos irreversibles e independientes en el interior de la célula viva.