

Al terminar los diez pasos de la glucólisis, la célula ha extraído apenas una fracción modesta del potencial químico encerrado en la glucosa: dos moléculas de ATP y dos de NADH. El residuo carbonado de esta ruptura son dos moléculas de piruvato ($C_3H_4O_3$). Lejos de ser ceniza metabólica inerte, el piruvato se encuentra en un estado de reducción intermedio; sus enlaces covalentes conservan más del 90 % de la energía libre estándar de combustión del azúcar original.
Sin embargo, el piruvato no puede decidir su destino por sí solo. Se encuentra ante una bifurcación metabólica crítica que depende exclusivamente de una variable ambiental: la presencia o ausencia de oxígeno molecular ($O_2$).
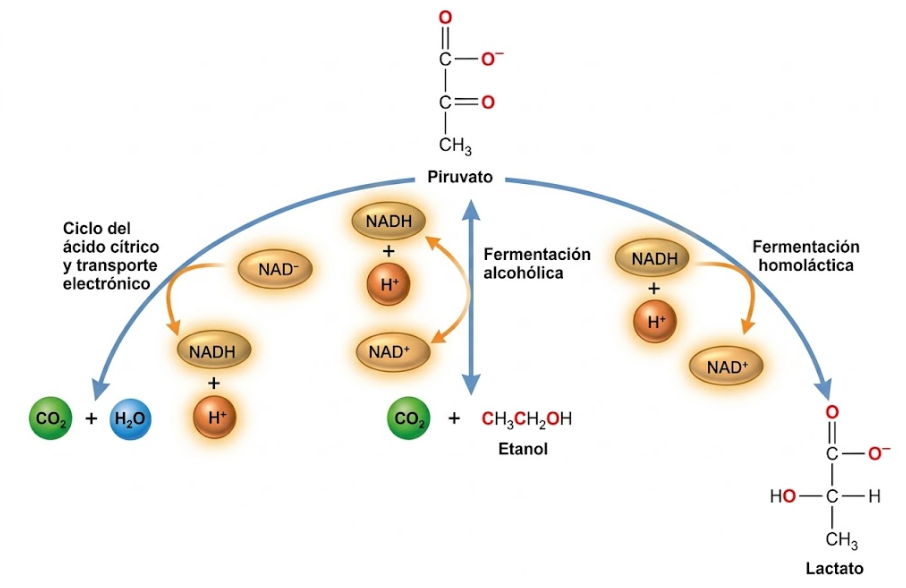
El embudo del $\text{NAD}^+$: La urgencia de no detenerse
Para entender por qué el piruvato debe procesarse de inmediato, hay que mirar hacia atrás, a la Reacción 6 de la glucólisis (la oxidación por la GAPDH). Esa enzima requiere de forma obligatoria una coenzima oxidada: $\text{NAD}^+$.
En el citoplasma celular, la reserva de $\text{NAD}^+$ libre es minúscula (del orden de micromoles). Si la glucólisis continúa marchando sin un mecanismo que retire los electrones del NADH para regenerar $\text{NAD}^+$, toda la reserva celular de la coenzima se agota en una fracción de segundo. En ese instante, la reacción 6 se congela, la síntesis de ATP se detiene en seco y la célula colapsa por muerte energética.
El destino del piruvato es, ante todo, la solución a este estrangulamiento de óxido-reducción.
Vía 1: La autopista aerobia (Respiración celular y el cobro mayor)
Cuando el oxígeno abunda, la célula no tiene prisa por desechar los esqueletos carbonados; prefiere incinerarlos hasta el último electrón dentro de la mitocondria (o a través de la membrana plasmática en procariotas aerobios):
- El puente de transición (Descarboxilación oxidativa):
- El piruvato citoplasmático cruza las membranas mitocondriales mediante un transportador específico y aterriza en la matriz. Allí lo aguarda una descomunal máquina enzimática: el complejo de la piruvato deshidrogenasa (PDC). En una reacción irreversible, el piruvato pierde un átomo de carbono en forma de dióxido de carbono ($CO_2$), transfiere dos electrones a un $\text{NAD}^+$ para generar otro NADH, y suelda el fragmento de dos carbonos restante a la coenzima A, produciendo acetil-CoA.
- El ciclo del ácido cítrico (Ciclo de Krebs):
- La acetil-CoA ingresa en este engranaje cíclico anfibólico, donde sus dos carbonos se oxidan completamente a dos moléculas más de $CO_2$. En cada vuelta, el ciclo cosecha un botín concentrado de electrones en forma de tres NADH, un $\text{FADH}_2$ y un enlace de alta energía (GTP o ATP).
- La cadena respiratoria y la fosforilación oxidativa:
- Todos los electrones rescatados por el NADH y el $\text{FADH}_2$ son transferidos a una serie de complejos proteicos incrustados en la membrana mitocondrial interna. A medida que los electrones fluyen «cuesta abajo» hacia el aceptor final —el oxígeno molecular, que se reduce formando agua ($H_2O$)—, los complejos bombean protones hacia el espacio intermembrana. Este gradiente electroquímico impulsa a la ATP sintasa, una turbina rotatoria que fabrica alrededor de 30 a 32 moléculas de ATP por cada glucosa completa.
Vía 2: Las rutas de emergencia anaerobias (Las fermentaciones)
¿Qué sucede si el oxígeno escasea —como en el tejido muscular de un atleta en pleno esprint agónico— o si el organismo carece por completo de cadena respiratoria (como las bacterias anaerobias o los eritrocitos humanos)?
En ausencia de oxígeno, la cadena de transporte electrónico mitocondrial se bloquea por saturación de electrones, el ciclo de Krebs se detiene por falta de coenzimas oxidadas y las mitocondrias cierran sus compuertas. Para sobrevivir, la célula recurre a la fermentación: un proceso catabólico puramente citoplásmico donde el propio piruvato (o un derivado suyo) actúa como aceptor final de los electrones del NADH, sacrificando el rendimiento energético a cambio de regenerar urgentemente el $\text{NAD}^+$ que mantenga viva la glucólisis.
La fermentación láctica: Músculos al límite y bacterias lácticas
En la fermentación homoláctica, el proceso se resuelve en un único paso catalizado por la enzima lactato deshidrogenasa (LDH):
$$\text{Piruvato} + \text{NADH} + \text{H}^+ \xrightleftharpoons{\text{Lactato deshidrogenasa}} \text{L-Lactato} + \text{NAD}^+$$
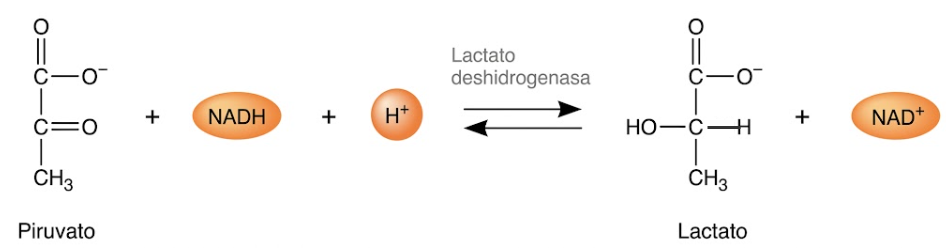
El carbono carbonílico del piruvato se reduce a un grupo hidroxilo al recibir el ion hidruro del NADH. El $\text{NAD}^+$ queda libre al instante para regresar a la reacción 6 de la glucólisis:
- En el músculo esquelético: Durante el esfuerzo anaeróbico intenso, el lactato se vierte a la sangre para evitar la acidificación intracelular terminal y viaja hasta el hígado, donde se reconvierte en glucosa a través del gasto energético de la gluconeogénesis (ciclo de Cori).
- En bacterias homolácticas (Lactobacillus, Streptococcus): Canalizan prácticamente todo su piruvato a la síntesis de ácido láctico. La acumulación de este ácido desploma el pH del medio, desnaturalizando las proteínas de la leche (lo que produce el cuajado del yogur y los quesos) e impidiendo el crecimiento de microbios patógenos competidores.
- Fermentación ácida mixta y heteroláctica: En ecosistemas complejos como el rumen del ganado bovino, comunidades bacterianas simbióticas descomponen la celulosa vegetal produciendo un cóctel de ácidos grasos volátiles (acetato, propionato, butirato y lactato), además de $CO_2$ y metano ($CH_4$). El animal absorbe estos ácidos orgánicos a través del epitelio ruminal y los utiliza como su principal fuente de energía metabólica.
La fermentación alcohólica: El invento de las levaduras
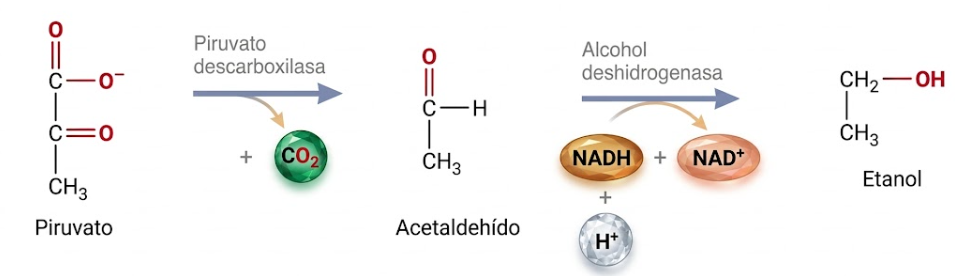
Las levaduras (como Saccharomyces cerevisiae) y ciertas bacterias resuelven la regeneración de $\text{NAD}^+$ mediante una estrategia en dos actos independientes:
- Descarboxilación a acetaldehído: La enzima piruvato descarboxilasa (ausente en el ser humano) extirpa el grupo carboxilo del piruvato, liberando una molécula de $CO_2$ gaseoso y generando un aldehído de dos carbonos: el acetaldehído. Esta enzima depende de un cofactor derivado de la vitamina B1: el pirofosfato de tiamina (TPP).
- Reducción a etanol: La enzima alcohol deshidrogenasa transfiere los electrones del NADH al acetaldehído, reduciéndolo a etanol y regenerando el $\text{NAD}^+$.
$$\text{Piruvato} \xrightarrow{\text{Piruvato descarboxilasa}} \text{Acetaldehído} + \text{CO}_2$$
$$\text{Acetaldehído} + \text{NADH} + \text{H}^+ \xrightarrow{\text{Alcohol deshidrogenasa}} \text{Etanol} + \text{NAD}^+$$
Esta reacción ancestral sustenta industrias milenarias: el gas $CO_2$ atrapado en la masa es el responsable de inflar las burbujas que hacen esponjoso al pan y dotan de efervescencia a la cerveza y los espumosos, mientras que el etanol generado confiere la graduación al vino y los licores.
La química industrial de los microbios: El caso del butanol
La versatilidad de la fermentación bacteriana va mucho más allá del lactato y el alcohol etílico. Microorganismos del género Clostridium desarrollaron ramas fermentativas especializadas para deshacerse del exceso de equivalentes de reducción:
- La fermentación ABE (Acetona-Butanol-Etanol): La bacteria anaerobia Clostridium acetobutylicum desvía el piruvato y la acetil-CoA hacia la síntesis masiva de butanol, acetona y etanol.
- Trascendencia histórica: A principios del siglo XX, el químico Chaim Weizmann perfeccionó este proceso biotecnológico para producir acetona a escala industrial, un solvente imprescindible para fabricar cordita (pólvora sin humo) durante la Primera Guerra Mundial. Durante décadas, el butanol obtenido de estas cubas bacterianas abasteció la producción de caucho sintético, pinturas automotrices y detergentes, hasta que el auge de la petroquímica basada en el petróleo fósil abarató la síntesis inorgánica.
El piruvato se revela así como la auténtica encrucijada bioenergética de la biosfera: una molécula bisagra que en presencia de oxígeno alimenta el reactor mitocondrial de alta potencia y que, en su ausencia, despliega un asombroso abanico de artesanías químicas para mantener intacto el flujo ininterrumpido de la vida.