

En la reacción anterior, la enolasa dejó el escenario preparado con precisión quirúrgica: secuestró a la molécula en una forma enólica artificial y comprimió un resorte de altísima inestabilidad electrónica tras el escudo de un grupo fosfato. En esta décima y última etapa, la célula retira el seguro del percutor: la enzima piruvato quinasa (PK) transfiere el fosfato del fosfoenolpiruvato (PEP) directamente al ADP, completando la segunda fosforilación a nivel de sustrato y clausurando la ruta con una cascada termodinámica arrolladora.
$$\text{Fosfoenolpiruvato} + \text{ADP} + \text{H}^+ \xrightarrow{\text{Piruvato quinasa / Mg}^{2+}, \text{K}^+} \text{Piruvato} + \text{ATP}$$
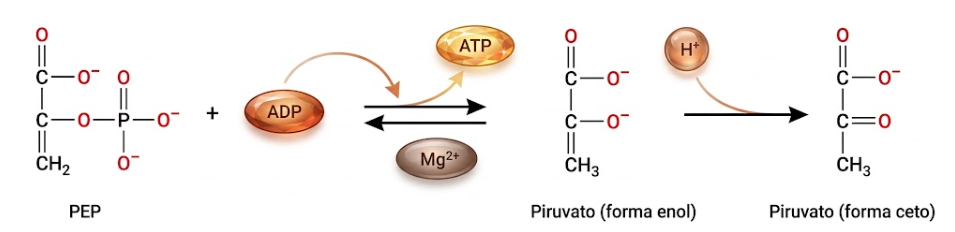
Al igual que en las etapas previas de la fase de cosecha, la reacción se ejecuta dos veces por cada molécula de glucosa original, generando dos moléculas de ATP y dejando el balance energético neto de la glucólisis en números verdes.
El secreto de la irreversibilidad: El colapso ceto-enólico
La reacción de la piruvato quinasa es la tercera y última reacción irreversible de la glucólisis ($\Delta G^{\circ\prime} \approx -31{,}4\text{ kJ/mol}$). Sin embargo, la transferencia física del grupo fosfato al ADP no explica por sí sola semejante caída energética; el verdadero motor termodinámico de este paso ocurre una fracción de segundo después y de forma espontánea:
- La cesión del fosfato: La piruvato quinasa arranca el grupo fosforilo del PEP y lo suelda al ADP. El compuesto orgánico resultante que abandona el centro activo de la enzima no es el piruvato ordinario, sino su forma inestable: el enolpiruvato.
- La tautomerización espontánea: Libre del grupo fosfato que lo mantenía encadenado, el enolpiruvato se reorganiza de manera fulminante e irreversible hacia la forma cetónica (cetopiruvato).
El enlace carbonilo ($C=O$) de la cetona es infinitamente más estable que el doble enlace $C=C$ adyacente al alcohol del enol. Este salto conformacional libera por sí solo unos $-46\text{ kJ/mol}$ de energía libre. Al colapsar hacia la forma ceto, la concentración de enolpiruvato en el medio cae prácticamente a cero, actuando como un sumidero cuántico que succiona la reacción hacia adelante e impide cualquier intento de marcha atrás.
La exigencia iónica: Dos metales para un disparo
A nivel catalítico, la piruvato quinasa es una de las pocas enzimas celulares que requiere obligatoriamente una coordinación bimetálica:
- Un catión divalente ($\text{Mg}^{2+}$ o $\text{Mn}^{2+}$): Neutraliza las cargas negativas del pirofosfato del ADP y posiciona los oxígenos en el ángulo exacto para el ataque nucleofílico.
- Un catión monovalente ($\text{K}^+$): Induce un ajuste conformacional en el bolsillo activo que alinea la cadena polipeptídica con el sustrato. Sin concentraciones fisiológicas adecuadas de potasio intracelular, la enzima queda prácticamente paralizada.
El control de aduana: Alimentación hacia adelante y freno hormonal
Al ser la compuerta final del sistema, la piruvato quinasa cuenta con un tablero de mandos alostérico y endocrino de extrema finura:
- Activación por avance (Feed-forward): La enzima es activada alostéricamente por la fructosa-1,6-bisfosfato, el producto generado río arriba en la Reacción 3 por la PFK-1. Este mecanismo funciona como un aviso de tráfico por radio: en cuanto la PFK-1 autoriza la entrada de azúcar al inicio de la ruta, avisa a la piruvato quinasa al final de la línea para que despeje las vías y acelere el paso de metabolitos.
- Frenos de saturación energética: Cuando la célula tiene las calderas colmadas, la enzima se apaga alostéricamente ante concentraciones elevadas de ATP, acetil-CoA y ácidos grasos de cadena larga. También la inhibe la alanina, un aminoácido que se sintetiza en un solo paso a partir del propio piruvato; si abunda la alanina, significa que la célula ya dispone de ladrillos biosintéticos de sobra.
- El interruptor hepático (Isoenzima L frente a M): Mientras que la variante muscular (PK-M) trabaja a demanda del esfuerzo físico local, la isoenzima hepática (PK-L) obedece a la glucemia general. Durante el ayuno, el glucagón activa a la proteína quinasa A, que fosforila a la PK-L inactivándola. De este modo, el hígado frena el consumo de PEP en la glucólisis y desvía ese carbono hacia la gluconeogénesis para fabricar glucosa y enviarla a la sangre.
La auditoría contable: Balance neto de la glucólisis
Tras diez paradas moleculares, la transformación integral de la glucosa arroja un balance cerrado y exacto:
- Fase de inversión (Reacciones 1 a 5): Se consumieron 2 ATP (pasos de la hexoquinasa y la PFK-1) para estabilizar y partir la molécula en dos triosas fosfato.
- Fase de cosecha (Reacciones 6 a 10): Cada triosa generó 1 NADH (reacción 6) y 2 ATP (reacciones 7 y 10). Al multiplicarlo por dos, la cosecha bruta es de 4 ATP y 2 NADH.
- Rendimiento neto:
- $$\text{D-Glucosa} + 2\,\text{ADP} + 2\,\text{P}_i + 2\,\text{NAD}^+ \longrightarrow 2\,\text{Piruvato} + 2\,\text{ATP} + 2\,\text{NADH} + 2\,\text{H}^+ + 2\,\text{H}_2\text{O}$$
En cuestión de milisegundos y en la penumbra anaerobia del citoplasma, la célula no solo ha evitado el escape del azúcar y asegurado dos monedas de energía neta inmediata, sino que ha transformado un anillo inerte en dos moléculas de piruvato cargadas de potencial químico, listas para enfrentarse a la gran decisión de la respiración celular.