

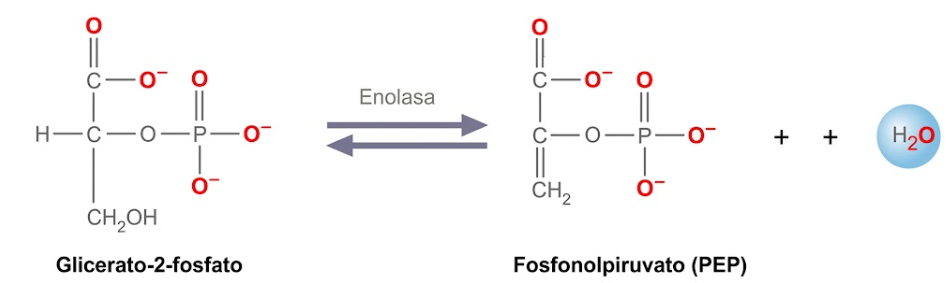
Trasladar el grupo fosfato del carbono 3 al carbono 2 en el paso anterior parecía una simple mudanza de oficina. Sin embargo, en la Reacción 9, esa reubicación revela su auténtico propósito biofísico: la enzima enolasa (o fosfopiruvato hidratasa) retira una molécula de agua del 2-fosfoglicerato, transformando un compuesto dócil en el metabolito fosforilado con mayor energía de toda la biología celular: el fosfoenolpiruvato (PEP).
$$\text{2-Fosfoglicerato} \xrightleftharpoons{\text{Enolasa / Mg}^{2+}} \text{Fosfoenolpiruvato (PEP)} + \text{H}_2\text{O}$$
La redistribución de la energía: Crear un volcán sin añadir calor
Curiosamente, el cambio de energía libre estándar de esta reacción es modesto ($\Delta G^{\circ\prime} \approx +1{,}8\text{ kJ/mol}$) y transcurre en equilibrio reversible en el citoplasma. La enolasa no añade energía externa al sistema; lo que hace es redistribuir drásticamente la energía interna de la molécula:
- La energía libre estándar de hidrólisis del 2-fosfoglicerato ronda unos discretos $-12{,}6\text{ kJ/mol}$ (un éster fosfato convencional).
- Al deshidratar la molécula, el potencial de transferencia de fosforilo del fosfoenolpiruvato se dispara hasta los $-61{,}9\text{ kJ/mol}$ (casi el doble que el del propio ATP, que se sitúa en $-30{,}5\text{ kJ/mol}$).
El resorte amartillado: El secuestro de la forma enol
¿De dónde sale semejante salto energético si la reacción no consume ATP? La respuesta reside en un fenómeno químico fundamental: la tautomerización ceto-enólica.
- La inestabilidad del enol: Una estructura enol (un doble enlace $C=C$ directamente adyacente a un grupo hidroxilo, $-OH$) es termodinámicamente inestable y tiende de forma espontánea a reorganizarse en la forma ceto (con un carbonilo $=O$), mucho más relajada y estable.
- El pasador de seguridad: Al eliminar el agua, la enolasa introduce el doble enlace entre el C-2 y el C-3, creando un enol. Sin embargo, como el oxígeno del C-2 está unido covalentemente al grupo fosfato, la molécula queda atrapada a la fuerza en la forma enol. El fosfato actúa como el pasador que mantiene un resorte comprimido al máximo: mientras el fosfato esté ahí puesto, el PEP no puede desarmarse hacia la forma ceto ni estabilizarse por resonancia.
En cuanto una enzima retire ese fosfato en el paso 10, el resorte se disparará con violencia termodinámica, liberando una avalancha de energía que arrastrará la síntesis de ATP.
El centro activo y la diana del fluoruro
La enolasa es una metaloenzima dimérica que no puede dar un solo paso sin la ayuda de dos iones de magnesio ($Mg^{2+}$) por cada centro activo:
- El primer catión de magnesio se coordina con los oxígenos del grupo carboxilo (C-1) del 2-PG, neutralizando su carga y deformando la molécula para exponer el protón del C-2.
- Una base del centro activo (un residuo de lisina) arranca el protón del C-2.
- El segundo catión de magnesio estabiliza los electrones resultantes mientras un residuo ácido (glutamato) facilita la salida del grupo hidroxilo del C-3 en forma de agua.
Este requerimiento estricto de magnesio convierte a la enolasa en una diana farmacológica y de diagnóstico muy precisa:
- El tubo gris del laboratorio: Cuando te extraen sangre para medir la glucemia, el tubo suele llevar un tapón gris cargado con fluoruro de sodio (NaF). El ion fluoruro ($F^-$) se combina con el fosfato inorgánico y los iones $Mg^{2+}$, formando un complejo insoluble de fluorofosfato de magnesio que sella el centro activo de la enolasa. Al apagar la enolasa, los glóbulos rojos dejan de consumir la glucosa de la muestra, garantizando que el análisis refleje los niveles reales del paciente y no una lectura falsamente baja.
- La protección dental: El fluoruro de las pastas de dientes actúa bajo el mismo principio: inhibe la enolasa de las bacterias cariogénicas orales (como Streptococcus mutans), privándolas de energía glucolítica y bloqueando la producción de los ácidos que perforan el esmalte.
Con el fosfoenolpiruvato armado y listo para detonar, la glucólisis llega a su décimo y último acto: la recolección definitiva de energía y la forja del piruvato.