

Tras cobrar los primeros dividendos de ATP en la reacción de la fosfoglicerato quinasa, la célula se queda en el citosol con una molécula de 3-fosfoglicerato (3-PG). Aunque todavía porta un átomo de fósforo, el 3-PG se encuentra en un callejón sin salida energético: su grupo fosfato está anclado a un alcohol primario mediante un enlace fosfoéster ordinario de baja energía ($\Delta G^{\circ\prime} \approx -12{,}6\text{ kJ/mol}$).
Dado que sintetizar una molécula de ATP a partir de ADP exige un peaje termodinámico de $+30{,}5\text{ kJ/mol}$, el 3-PG es incapaz de transferir directamente su fosfato. Para extraer la última tanda de energía neta de la glucólisis, la célula necesita convertir este compuesto dócil en fosfoenolpiruvato (PEP), una supermolécula con un potencial de transferencia de fosforilo insólito ($\Delta G^{\circ\prime} \approx -58{,}6\text{ kJ/mol}$).
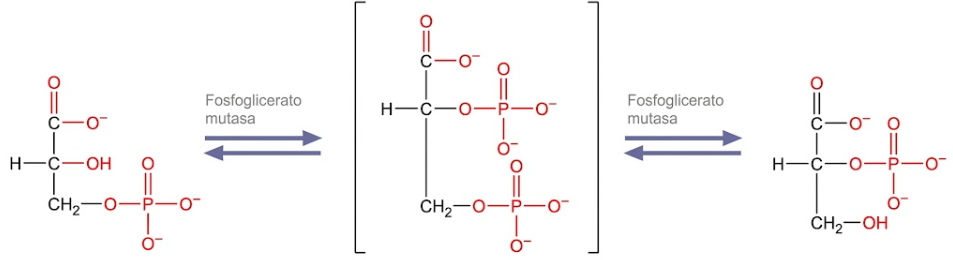
El primer paso de esta metamorfosis no consiste en retirar átomos, sino en una maniobra de recolocación geométrica: la fosfoglicerato mutasa (PGM) muda el grupo fosfato del carbono 3 al carbono 2.
$$\text{3-Fosfoglicerato} \xrightleftharpoons{\text{Fosfoglicerato mutasa}} \text{2-Fosfoglicerato}$$
La lógica del cambio: Preparar la catapulta de la enolasa
A simple vista, mover un grupo funcional de un carbono a su vecino parece una sutileza irrelevante. Sin embargo, en bioquímica la posición lo es todo:
- En el carbono 3, el fosfato está demasiado lejos del grupo carboxilo (C-1) y blindado contra cualquier deshidratación útil.
- Al desplazarlo al carbono 2, el fosfato queda situado justo al lado del carboxilo y deja libre el grupo hidroxilo del C-3.
Esta reorganización es el requisito físico indispensable para el paso 9: la enzima enolasa podrá retirar una molécula de agua entre el C-2 y el C-3, introduciendo un doble enlace carbono-carbono que dejará al fosfato atrapado en una conformación inestable de altísima tensión electrónica. La mutasa no genera energía por sí misma, pero coloca la mecha en el barril de pólvora.
El baile de las dos histidinas: Una enzima que ya viene «cargada»
El nombre «mutasa» designa a un grupo especial de isomerasas que catalizan el desplazamiento intramolecular de un grupo funcional. Sin embargo, la fosfoglicerato mutasa no "desliza" el fosfato a lo largo del esqueleto carbonado; ejecuta un elegante ciclo de adición y eliminación donde la propia enzima actúa como donante y receptor:
- El estado activado: La enzima en reposo no está desnuda. En su centro activo alberga un residuo de histidina fosforilada ($His\text{-}P$) con carga electroquímica lista para disparar.
- 1. La adición (Formación del intermediario transitorio): Cuando el 3-fosfoglicerato entra en el bolsillo catalítico, la histidina cede su grupo fosfato al hidroxilo libre del carbono 2. Durante una fracción de segundo, la molécula se transforma en 2,3-bisfosfoglicerato (2,3-BPG), firmemente anclado a la enzima.
- 2. La eliminación (La recuperación del cargador): Una segunda histidina básica (o la misma histidina desfosforilada en una orientación ligeramente distinta) arranca de inmediato el grupo fosfato original situado en el carbono 3.
- El desenlace: La molécula resultante, liberada al citosol, es el 2-fosfoglicerato (2-PG), mientras que la enzima recupera su histidina fosforilada inicial, quedando lista para recibir a la siguiente molécula de 3-PG sin perder un solo paso.
El cebador metabólico: ¿Por qué hace falta una pizca de 2,3-BPG?
Este mecanismo de relevo encierra un talón de Aquiles: si el intermediario 2,3-BPG se escapa accidentalmente del centro activo antes de que la histidina retire el fosfato de la posición 3, la enzima queda desfosforilada e inerte.
Para evitar que la maquinaria glucolítica se apague por desgaste, la célula mantiene una concentración diminuta de 2,3-bisfosfoglicerato libre flotando en el citosol celular. Si una molécula de fosfoglicerato mutasa pierde su fosfato y queda «descargada», se une a una molécula de 2,3-BPG del medio, le arranca un fosfato para recargar su histidina activa y devuelve un 2-PG o 3-PG al flujo metabólico. El 2,3-BPG actúa aquí como un cable de batería para arrancar el motor si este se cala.
(En algunas bacterias y plantas superiores existe una variante de la enzima independiente de cofactor/2,3-BPG que utiliza iones manganeso ($Mn^{2+}$) para transferir el fosfato mediante un mecanismo intramolecular directo sin necesidad de una histidina pre-fosforilada).
Termodinámica de vaivén: Otra compuerta de dos direcciones
Al igual que ocurría en las isomerizaciones de las reacciones 2 y 5, la interconversión entre el 3-PG y el 2-PG tiene una variación de energía libre estándar ligeramente positiva ($\Delta G^{\circ\prime} \approx +4{,}4\text{ kJ/mol}$), pero en las concentraciones del citosol opera prácticamente en el equilibrio ($\Delta G \approx 0\text{ kJ/mol}$).
Esto significa que la reacción es completamente reversible: cuando el hígado activa la gluconeogénesis para sintetizar glucosa durante el ayuno, la misma fosfoglicerato mutasa cataliza la transformación en sentido inverso (de 2-PG a 3-PG) sin requerir enzimas alternativas ni gasto de nucleótidos.
Con el fosfato reubicado en el carbono 2, la molécula está armada para el penúltimo acto de la glucólisis: la maniobra de deshidratación que liberará el verdadero potencial energético del azúcar.