

Tras seis reacciones de gasto e ingeniería molecular, la glucólisis alcanza su esperado punto de retorno de inversión (break-even point). La enzima fosfoglicerato quinasa (PGK) toma el 1,3-bisfosfoglicerato (1,3-BPG) recién salido de la reacción 6 y transfiere su grupo fosfato de alta energía directamente a una molécula de difosfato de adenosina (ADP).
$$\text{1,3-Bisfosfoglicerato} + \text{ADP} \xrightleftharpoons{\text{Fosfoglicerato quinasa / Mg}^{2+}} \text{3-Fosfoglicerato} + \text{ATP}$$
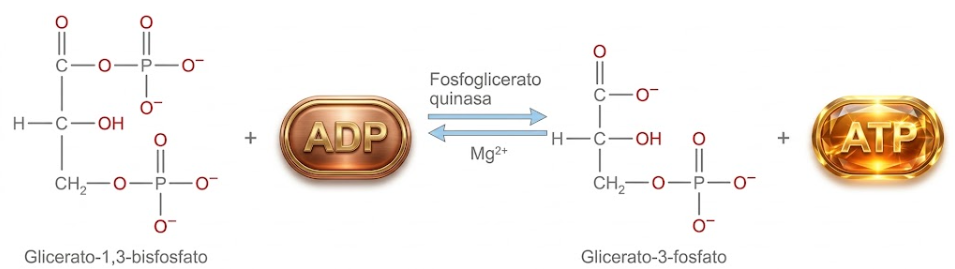
Al ejecutarse por duplicado para cada una de las dos triosas nacidas de la glucosa original, esta reacción genera dos moléculas de ATP. Con este paso, la célula cancela la deuda contraída en las reacciones 1 y 3: el balance neto de energía se sitúa exactamente en cero. Todo el ATP que se fabrique a partir de aquí representará beneficio industrial limpio.
Fosforilación a nivel de sustrato: Energía sin turbinas mitocondriales
La reacción 7 es el primer ejemplo de fosforilación a nivel de sustrato de la ruta. En la fosforilación oxidativa mitocondrial, el ATP se genera indirectamente aprovechando el flujo de protones a través de la ATP sintasa; en la fosforilación a nivel de sustrato, en cambio, el ATP se sintetiza de forma directa mediante la transferencia mecánica de un fosfato desde una molécula donante.
Para que esto ocurra de forma termodinámicamente espontánea, el sustrato donante debe tener un potencial de transferencia de grupo fosforilo superior al del propio ATP:
- Energía libre de hidrólisis del 1,3-BPG: $\Delta G^{\circ\prime} \approx -49{,}3\text{ kJ/mol}$ (enlace anhídrido mixto de acil-fosfato).
- Energía libre requerida para fosforilar el ADP a ATP: $\Delta G^{\circ\prime} \approx +30{,}5\text{ kJ/mol}$.
La diferencia neta deja un balance fuertemente exergónico ($\Delta G^{\circ\prime} \approx -18{,}8\text{ kJ/mol}$), liberando suficiente energía para impulsar la síntesis de ATP con solvencia.
El motor de tracción acoplado: El rescate del paso 6
La reacción 6 (GAPDH) era energéticamente desfavorable en condiciones estándar ($\Delta G^{\circ\prime} \approx +6{,}3\text{ kJ/mol}$). Sin embargo, la fosfoglicerato quinasa actúa en tándem como una locomotora termodinámica:
- Al consumir el 1,3-BPG con tanta avidez y liberar tanta energía, la reacción 7 mantiene los niveles de 1,3-BPG intracelulares en valores prácticamente despreciables.
- Este drenaje continuo empuja el equilibrio de la reacción previa hacia adelante.
- La suma de ambas reacciones consecutivas ($+6{,}3 - 18{,}8 = -12{,}5\text{ kJ/mol}$) convierte a todo el bloque de oxidación y fosforilación en un proceso espontáneo y unidireccional en el citosol.
A pesar de su $\Delta G^{\circ\prime}$ marcadamente negativo, la concentración real de reactivos y productos en la célula mantiene esta reacción cercana al equilibrio ($\Delta G \approx 0\text{ kJ/mol}$), lo que permite a la PGK operar en sentido inverso durante la gluconeogénesis.
La trampa del agua: El cierre de concha de la PGK
Al igual que la hexoquinasa, la PGK consta de dos dominios globulares unidos por una región bisagra flexible:
- El 1,3-BPG se acopla a un dominio y el complejo ADP-$Mg^{2+}$ se une al otro.
- Al entrar los sustratos, ambos lóbulos rotan y se cierran herméticamente como una almeja, expulsando por completo las moléculas de agua del centro activo.
Este aislamiento hidrofóbico es indispensable: si una molécula de agua tuviera acceso libre al grupo acil-fosfato del 1,3-BPG dentro del bolsillo catalítico, el fosfato se hidrolizaría directamente a fosfato inorgánico libre ($P_i$), disipando la energía en forma de calor y arruinando la síntesis de ATP.
El peaje de los glóbulos rojos: El ciclo de Rapoport-Luebering
En los eritrocitos humanos ocurre una desviación metabólica de enorme trascendencia fisiológica. Una parte sustancial del 1,3-BPG no pasa por la PGK, sino que se desvía mediante la enzima bisfosfoglicerato mutasa para formar 2,3-bisfosfoglicerato (2,3-BPG):
- El 2,3-BPG es el regulador alostérico maestro de la hemoglobina: se ancla en su cavidad central y disminuye su afinidad por el oxígeno, forzando a los glóbulos rojos a soltar el $O_2$ en los tejidos periféricos que sufren hipoxia.
- El coste energético: Tomar este desvío impide fabricar la molécula de ATP correspondiente al paso 7. Los glóbulos rojos sacrifican deliberadamente parte de su rendimiento energético glucolítico a cambio de optimizar la descarga de oxígeno en el organismo.