

La sexta etapa de la glucólisis marca el inicio oficial de la fase de rendimiento o cosecha: tras haber gastado dos moléculas de ATP en la preparación del azúcar, la célula comienza por fin a recolectar beneficios. En esta reacción, la enzima gliceraldehído-3-fosfato deshidrogenasa (GAPDH) ejecuta dos tareas formidables en un único movimiento: oxida el grupo aldehído del azúcar extrayendo electrones de alta energía y acopla un grupo fosfato libre sin consumir una sola molécula de ATP.
$$\text{Gliceraldehído-3-fosfato} + \text{NAD}^+ + \text{P}_i \xrightleftharpoons{\text{GAPDH}} \text{1,3-Bisfosfoglicerato} + \text{NADH} + \text{H}^+$$
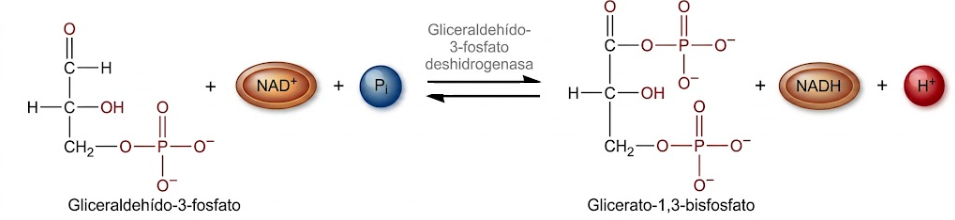
Dado que cada molécula de glucosa original se escindió en dos triosas, esta reacción ocurre por duplicado para cada hexosa que ingresa en la ruta.
El botín energético: Captura de electrones en el NADH
Hasta este punto, la glucólisis solo había reordenado y fragmentado átomos. La reacción de la GAPDH es la primera reacción de óxido-reducción de toda la vía:
- El carbono 1 del gliceraldehído-3-fosfato (un aldehído) se oxida formalmente hasta el nivel de un derivado de ácido carboxílico.
- Los dos electrones y el protón arrancados en esta combustión microscópica no se pierden en el medio: se transfieren en forma de un ion hidruro ($:H^-$) a la coenzima oxidada $NAD^+$, reduciéndola a NADH.
Este NADH representa energía potencial de primer nivel. En presencia de oxígeno, estos electrones viajarán a la mitocondria para alimentar la cadena respiratoria y generar grandes cantidades de ATP; en condiciones anaerobias, este mismo NADH se utilizará para reducir el piruvato y regenerar el $NAD^+$.
Fosforilar sin gastar ATP: La magia del fosfato inorgánico
En las reacciones 1 y 3, pegar un grupo fosfato a la glucosa le costó a la célula dos valiosas monedas de ATP. En la reacción 6 ocurre algo insólito: la GAPDH incorpora un segundo fosfato utilizando ortofosfato inorgánico libre ($P_i$) disuelto en el citosol.
El producto resultante es el 1,3-bisfosfoglicerato (1,3-BPG), una molécula que contiene en su carbono 1 un enlace anhídrido mixto de acil-fosfato. Este enlace acumula una energía libre de hidrólisis colosal ($\Delta G^{\circ\prime} \approx -49{,}3\text{ kJ/mol}$), muy superior a la del propio ATP ($\Delta G^{\circ\prime} \approx -30{,}5\text{ kJ/mol}$). La GAPDH no solo ha fosforilado la triosa de forma gratuita, sino que ha fabricado un intermediario supercargado listo para transferir ese fosfato al ADP en el siguiente paso.
La coreografía catalítica: La cisteína y el puente tioéster
La GAPDH es un tetrámero simétrico compuesto por cuatro subunidades idénticas, cada una con un pliegue de Rossmann para anclar el $NAD^+$ y un bolsillo catalítico donde colaboran dos aminoácidos clave: una cisteína (con su grupo tiol, $-SH$) y una histidina básica.
El ciclo catalítico se resuelve en cuatro actos de precisión atómica:
- 1. El anzuelo nucleofílico: La histidina del centro activo retira el protón del grupo tiol de la cisteína, transformándola en un tiolato cargado negativamente. Este azufre ataca el carbono carbonílico del aldehído del G-3-P, formando un enlace covalente transitorio: el hemiacetal tiólico.
- 2. El salto del hidruro: Con el sustrato amarrado a la enzima, el carbono carbonílico transfiere un ion hidruro ($:H^-$) directamente al anillo de nicotinamida del $NAD^+$ vecino. Al perder sus electrones, el azúcar se oxida y queda transformado en un intermedio acil-enzima unido por un enlace tioéster de alta energía.
- 3. El relevo de la coenzima: El NADH recién formado se desengancha del centro activo y es reemplazado inmediatamente por una nueva molécula de $NAD^+$. La presencia del nuevo $NAD^+$ polariza el enlace tioéster, volviendo al carbono carbonílico extremadamente vulnerable a un nuevo ataque.
- 4. La fosforólisis liberadora: Una molécula de fosfato inorgánico ($P_i$) entra en el centro activo y ataca al carbonilo del tioéster. El enlace de azufre se rompe, regenerando el tiol libre de la cisteína en la enzima y liberando al citosol la molécula de 1,3-bisfosfoglicerato.
El truco biofísico: ¿Por qué era obligatorio el tioéster?
Desde el punto de vista termodinámico, oxidar un aldehído a un ácido carboxílico es una caída cuesta abajo muy favorable ($\Delta G^{\circ\prime} \approx -43\text{ kJ/mol}$), mientras que unir un fosfato a un ácido carboxílico para formar un anhídrido acilo es una subida empinada y muy desfavorable ($\Delta G^{\circ\prime} \approx +49\text{ kJ/mol}$).
Si estas dos reacciones ocurrieran por separado en disolución, la enorme energía liberada por la oxidación se disiparía instantáneamente como calor en el agua celular, y el fosfato jamás podría pegarse al ácido resultante.
La genialidad evolutiva de la GAPDH radica en acoplar ambas reacciones a través del enlace tioéster. Al sellar el azúcar oxidado con el azufre de la cisteína, la enzima atrapa la energía libre de la oxidación dentro del enlace covalente acil-enzima. Este "acumulador" temporal conserva la energía intacta a la espera del fosfato inorgánico, permitiendo que la reacción global avance con una variación de energía libre casi neutra ($\Delta G^{\circ\prime} \approx +6{,}3\text{ kJ/mol}$), fácilmente desplazable hacia adelante por la retirada inmediata de los productos.
La trampa mortal del arseniato: El desacoplador perfecto
La dependencia que tiene la GAPDH del fosfato inorgánico expone a la célula a una de las armas toxicológicas más clásicas: el arsénico.
El anión arseniato ($AsO_4^{3-}$) tiene un radio atómico, carga y geometría casi idénticos a los del ion fosfato ($PO_4^{3-}$):
- La GAPDH confunde el arseniato con el fosfato y lo utiliza para atacar al intermediario acil-enzima, generando 1-arseno-3-fosfoglicerato.
- Este enlace anhídrido de acil-arseniato es inherentemente inestable en agua y sufre una hidrólisis espontánea e instantánea a 3-fosfoglicerato sin intervención enzimática.
- Como resultado trágico para la célula, la oxidación y el consumo de glucosa continúan, pero el paso 7 jamás podrá extraer el fosfato para fabricar ATP. El arseniato cortocircuita la glucólisis: la célula quema combustible a toda velocidad sin obtener a cambio una sola molécula de beneficio energético.