

Tras la fractura ejecutada por la aldolasa en el paso anterior, la célula se encuentra ante un dilema logístico crítico. Ha invertido dos moléculas de ATP y ha roto una hexosa en dos fragmentos de tres carbonos, pero los productos obtenidos son desiguales: una molécula de gliceraldehído-3-fosfato (G-3-P) y una de dihidroxiacetona fosfato (DHAP).
La maquinaria de la segunda fase de la glucólisis —diseñada para cosechar energía— solo admite como combustible al G-3-P. Si la célula no pudiera aprovechar la DHAP, la mitad de los carbonos de la glucosa y la mitad de la energía invertida se perderían irremediablemente. Para rescatar este fragmento entra en juego la quinta enzima de la ruta: la triosa fosfato isomerasa (TIM).
$$\text{Dihidroxiacetona fosfato (DHAP)} \xrightleftharpoons{\text{Triosa fosfato isomerasa (TIM)}} \text{Gliceraldehído-3-fosfato (G-3-P)}$$
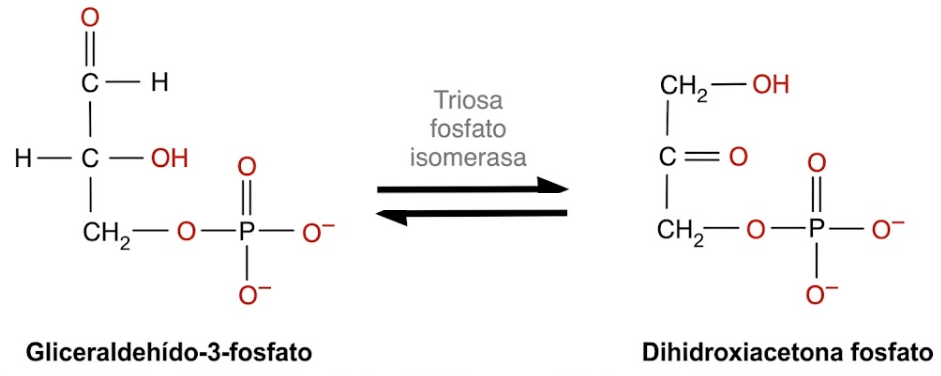
Con esta simple conversión intramolecular, la molécula original de glucosa queda oficialmente duplicada en dos moléculas idénticas de G-3-P, listas para alimentar la fase de rendimiento.
La paradoja del 96 %: Vencer al equilibrio químico
En el tubo de ensayo, la termodinámica de esta isomerización parece jugar en contra de la célula:
- La variación de energía libre estándar es positiva ($\Delta G^{\circ\prime} = +7{,}5\text{ kJ/mol}$).
- En un sistema cerrado en equilibrio químico, más del 95 % de la mezcla permanece como DHAP y menos del 5 % existe como G-3-P.
¿Cómo logra el citoplasma revertir semejante desventaja? Aplicando una vez más el principio de Le Chatelier.
La siguiente enzima de la ruta, la gliceraldehído-3-fosfato deshidrogenasa (GAPDH), consume G-3-P a una velocidad vertiginosa en cuanto este aparece. Al drenar continuamente el producto del medio, la concentración intracelular de G-3-P se mantiene en niveles residuales. Este vacío molecular desplaza el equilibrio químico de forma implacable hacia la derecha, obligando a la TIM a transformar toda la reserva de DHAP en G-3-P.
Perfección catalítica: El límite biofísico de la evolución
En los tratados de enzimología, la triosa fosfato isomerasa ostenta un título de honor: es una enzima catalíticamente perfecta.
Una enzima alcanza la "perfección catalítica" cuando su constante de especificidad ($k_{cat} / K_m$) roza el límite teórico impuesto por las leyes físicas: entre $10^8$ y $10^9\text{ M}^{-1}\text{s}^{-1}$. A esta velocidad, la enzima ya no puede evolucionar para ser más rápida mediante mutaciones en su centro activo, porque reacciona tan pronto como una molécula de sustrato colisiona con ella por difusión browniana. La velocidad de la reacción está limitada únicamente por la rapidez con la que el sustrato puede nadar a través del agua celular para tocar la enzima.
La trampa mortal del metilglioxal y la tapadera molecular
El mecanismo químico de la TIM implica transformar la cetona de la DHAP en un aldehído a través de un intermediario plano e inestable: el enediolato.
Este intermediario encierra un grave peligro para la célula:
- Si el enediolato escapa al citoplasma antes de tiempo, sufre una descomposición no enzimática espontánea, perdiendo el grupo fosfato y convirtiéndose en metilglioxal.
- El metilglioxal es un compuesto altamente citotóxico: un electrófilo agresivo que se une a residuos de lisina y arginina en las proteínas celulares, inactivándolas y generando productos finales de glicación avanzada (AGEs).
Para neutralizar esta amenaza, la evolución equipó a la triosa fosfato isomerasa con una obra de arte mecánica: el bucle 6 (Loop 6), una cadena flexible de diez aminoácidos que actúa como una compuerta estanca.
En cuanto la DHAP entra al centro activo y se forma el intermediario enediolato, el bucle 6 se cierra herméticamente sobre el bolsillo catalítico mediante un cambio conformacional de varios ángstroms. La enzima sella el entorno impidiendo que el intermediario escape al agua circundante o elimine su fosfato. Solo cuando el hidrógeno ha sido transferido con éxito al carbono vecino y el G-3-P está completamente ensamblado, la compuerta se abre de nuevo, liberando el producto inocuo al citosol.
Balance de la Fase 1: El peaje ha sido pagado
Con la Reacción 5 concluye la fase de inversión o fase preparatoria de la glucólisis. El balance operativo hasta este punto revela la audacia de la estrategia celular:
- Materia prima inicial: 1 molécula de D-glucosa (6 carbonos).
- Consumo energético: 2 moléculas de ATP invertidas (reacciones de la hexoquinasa y la PFK-1).
- Rendimiento intermedio: 0 ATP producidos, 0 electrones recolectados.
- Producto final: 2 moléculas de gliceraldehído-3-fosfato (G-3-P).
El combustible ha sido atrapado, tensionado energéticamente y dividido en dos mitades gemelas de tres carbonos. A partir de la Reacción 6, la célula deja de gastar capital y comienza a cobrar los dividendos por partida doble.